lsajdñSALJD
ksjadÑSAJDKAJS
lsajdñSALJD
ksjadÑSAJDKAJS
lsajdñSALJD
ksjadÑSAJDKAJS
lsajdñSALJD
ksjadÑSAJDKAJS
Los Patos reales presentan patrones de comportamiento similares a los de los gansos espolonados (Plectropterus gambensis) y los patos crestudos (Sarkidiornis sylvicola). Machos y hembras suelen permanecer separados durante la mayor parte del año, posiblemente debido al comportamiento sexualmente agresivo de los machos, que emplean las patas provistas de garras afiladas y las alas durante los enfrentamientos. Antes de levantar el vuelo, realizan movimientos repetidos de extensión diagonal del cuello y el pico hacia arriba, un patrón considerado primitivo y compartido con otras especies de patos. Ambos sexos se acicalan con frecuencia, aunque los machos pueden extender simultáneamente el cuello y la cola en posición vertical (Johnsgard, 1965:99-100).
Se trata de aves omnívoras y versátiles, capaces de aprovechar diferentes ambientes, como marismas abiertas y campos de cereales. Su alimentación se desarrolla mediante el volteo en aguas poco profundas, el chapoteo en la superficie y el pastoreo en las orillas herbáceas y en los terrenos agrícolas próximos al agua (Eitniear et al., 2020; Baldassarre, 2014:263).
En cuanto a su comportamiento social y hábitos de descanso, pueden observarse de forma solitaria, en pareja o en grupos familiares. Son aves ariscas y presentan hábitos arborícolas, utilizando los árboles como lugares de posado (de la Peña, 2015:118; de la Peña, 2025:146). Esta conducta podría estar relacionada con las condiciones ambientales de las regiones donde habitan, especialmente durante la temporada de lluvias, cuando el agua constituye prácticamente el único espacio disponible para descansar (Wetmore, 1926:71).
Los grupos suelen ser reducidos, con aproximadamente media docena de individuos. Sin embargo, pueden congregarse en mayor número en determinados lugares de descanso habituales, como los árboles. Estas agrupaciones presentan escasa cohesión social y tienden a dispersarse en distintas direcciones ante cualquier perturbación (Johnsgard, 2010:146).
Conducta sexual
La conducta sexual del pato criollo presenta cierta controversia en cuanto a su sistema de apareamiento. Aunque en cautividad se ha descrito como una especie promiscua, las observaciones realizadas en libertad apuntan a un comportamiento monógamo (Hoffmann, 1992; Eitniear et al., 2020). Sin embargo, otros autores señalan la ausencia de vínculos de pareja o familiares sólidos, así como la escasa complejidad de sus comportamientos de cortejo y formación de parejas (Johnsgard, 2010:146; Johnsgard, 1965:99-100). También se ha descrito como una especie polígama o promiscua, caracterizada por una actividad sexual intensa, con frecuentes exhibiciones y cópulas tanto en tierra como en el agua (Gamboa, 2019:126).
Las manifestaciones sexuales y agresivas son relativamente simples y presentan escasa diferenciación entre sí. La exhibición característica del macho consiste en erguir la cresta, sacudir lateralmente la cola, mantener las alas ligeramente separadas del cuerpo y realizar movimientos lentos de la cabeza hacia delante y hacia atrás. Durante este comportamiento emite un sonido suave, descrito como un susurro, una respiración agitada o un siseo, que aparece tanto en situaciones de excitación sexual como de hostilidad. Esta exhibición puede dirigirse indistintamente a las hembras como señal sexual o a otros machos como manifestación agresiva (Heinroth, 1911, en Johnsgard, 1965:99-100; Johnsgard, 2010:146).
Por su parte, la hembra presenta un repertorio social reducido y aparentemente carece de un comportamiento de incitación claramente definido. Su vocalización consiste principalmente en un graznido sencillo, que emite cuando se encuentra excitada o asustada, y ante las exhibiciones del macho suele responder huyendo, en ocasiones acompañada de dicha vocalización (Heinroth, 1911, en Johnsgard, 1965:99-100). No obstante, se ha señalado que la ausencia de comportamientos de incitación y de vínculos de pareja podría no ser tan absoluta como describió Heinroth, según las observaciones posteriores de Steinbacher (1953), recogidas por Johnsgard (1965:99-100).
La cópula tiene lugar tanto en el agua como en tierra, aunque se describe principalmente en el medio acuático. Habitualmente adopta una modalidad de sometimiento forzado, en la que el macho persigue, alcanza y domina a la hembra, generalmente de menor tamaño, que intenta escapar. El comportamiento precopulatorio puede resultar prolongado y poco coordinado, e incluye movimientos característicos de la cabeza y picoteos en las plumas dorsales de la hembra (Heinroth, 1911, en Johnsgard, 1965:99-100). Sin embargo, durante el periodo reproductivo, especialmente en la época de puesta, la hembra también puede solicitar activamente la cópula, adoptando una postura horizontal y aplanada sobre el agua frente al macho, que posteriormente realiza su secuencia de movimientos precopulatorios (Johnsgard, 1965:100; Gamboa, 2019:126).
Tras la cópula, la hembra suele bañarse vigorosamente, mientras que no se han descrito exhibiciones postcopulatorias definidas por parte del macho (Heinroth, 1911, en Johnsgard, 1965:99-100).
Conducta social e interespecífica
El Pato real presenta un comportamiento social caracterizado por una marcada territorialidad y frecuentes interacciones agresivas entre machos, especialmente durante la época reproductiva. Los enfrentamientos entre individuos se desarrollan mediante el empleo del pico, las alas y las patas, mientras que las exhibiciones de amenaza incluyen el levantamiento de la cresta, movimientos laterales de la cola, elevación parcial de las alas y vuelos circulares (Fischer et al., 1982; Gamboa, 2019:126). Esta agresividad contribuye a la dispersión de la población reproductora. Durante este periodo, un mismo macho puede asociarse con varias hembras, que ocasionalmente llegan a establecer sus nidos en lugares próximos (Johnsgard, 1965:99-100).
Fuera de la temporada reproductiva, los individuos presentan una mayor tendencia a agruparse, formando bandadas de tamaño variable, desde pequeños grupos hasta concentraciones de 50 o más ejemplares, que se desplazan por áreas relativamente extensas (Monroe, 1968, en Johnsgard, 1965:99-100). No obstante, también se describen como aves generalmente solitarias, que pueden encontrarse en parejas o pequeños grupos, sin establecer asociaciones habituales con otras especies (Eitniear et al., 2020). Estas agrupaciones suelen presentar escasa cohesión, por lo que, ante cualquier perturbación, los individuos tienden a dispersarse en distintas direcciones (Johnsgard, 1965:99-100).
En cuanto a sus hábitos diarios, los patos criollos suelen desplazarse mediante el vuelo durante las primeras horas de la mañana y al atardecer, mientras que durante las horas más cálidas permanecen descansando en las orillas. Al anochecer, buscan refugio en los árboles, donde pueden congregarse numerosos individuos, llegando a contabilizarse una docena o más de ejemplares en un mismo árbol (Wetmore, 1965:136; Phillips, 1923:60).
A pesar de su considerable tamaño, el pato criollo presenta una capacidad de vuelo rápida y potente, aunque algunos autores describen su desplazamiento aéreo como pesado y relativamente lento. Durante el vuelo puede producir un notable ruido de alas y, en los ejemplares adultos, los hombros blancos resultan especialmente visibles con cada aleteo. Aunque se han registrado vuelos a más de 80 metros de altura, habitualmente vuela a escasa altitud, apenas por encima de los árboles. Durante el aterrizaje, realiza fuertes aleteos para reducir la velocidad antes de posarse sobre el suelo (Johnsgard, 1976:163; Wetmore, 1926:71). Antes de emprender el vuelo, suele realizar movimientos repetidos de extensión diagonal del cuello y el pico hacia arriba (Johnsgard, 1965:99-100). Por lo demás, se caracteriza por ser un ave generalmente silenciosa, tanto durante el vuelo como en reposo (Johnsgard, 1976:163).
Movimientos
El pato criollo es principalmente sedentario y no presenta un patrón migratorio definido. Sus desplazamientos suelen ser locales y están relacionados fundamentalmente con la disponibilidad de agua durante la estación seca. También se han registrado apariciones ocasionales fuera de su área de reproducción habitual (del Hoyo et al., 1992:594). Su distribución y movimientos parecen estar condicionados por la ausencia de cambios estacionales bruscos de temperatura. Asimismo, no se observa una tendencia clara a formar grandes bandadas durante el periodo de muda posterior a la reproducción (Johnsgard, 2010:146).
Depredación
Los juveniles son especialmente vulnerables a la depredación, que constituye una de las principales causas de mortalidad durante las primeras etapas de desarrollo. Entre sus depredadores se encuentran caimanes, serpientes, tortugas, peces depredadores, diversas aves y mamíferos. Asimismo, las serpientes y los mapaches pueden depredar tanto los huevos como los polluelos recién eclosionados. Según Hoffmann (1992), la mortalidad de las crías puede alcanzar aproximadamente el 70 %, como consecuencia de la depredación y la escasez de alimento, aunque este porcentaje puede variar en función de las características de cada región.
Además de su vulnerabilidad, las crías precoces presentan comportamientos defensivos ante la presencia de posibles depredadores, como la emisión continuada de vocalizaciones mientras intentan huir. También se ha descrito una estrategia de defensa parental basada en la distracción del depredador: uno de los progenitores puede simular una lesión, arrastrando las alas por el suelo para desviar la atención de las crías y facilitar su protección. Una vez que considera que estas se encuentran fuera de peligro, el adulto recupera su comportamiento habitual y emprende el vuelo con normalidad (Cestari, 2009:69).
ksjadÑSAJDKAJS
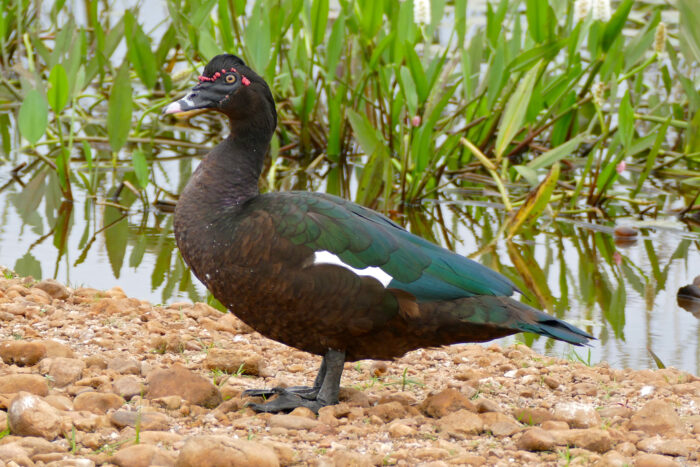
Según los siguientes autores: (de la Peña, 2025: 146); (de la Peña, 2015:118); Carboneras (1992:594); (Eitniear et al., 2020); (Wetmore, 1926:71); (Wetmore, 1965:134); (del Hoyo et al., 1992:594); (Johnsgard, 2010:145); (Leopold, 1972:163).
La especie presenta un marcado dimorfismo sexual, principalmente en el tamaño, la coloración del plumaje y el desarrollo de las estructuras carnosas de la cabeza. Aunque ambos sexos comparten un patrón general de coloración, las hembras son considerablemente más pequeñas y presentan un plumaje menos brillante, una menor extensión de blanco en las alas y carecen, por lo general, de cresta y carúnculas faciales. Asimismo, tienen la cara completamente emplumada y no presentan el engrosamiento característico de la base del pico de los machos (del Hoyo et al., 1992:594).
Macho adulto: Los adultos son de color negro parduzco a negro, con una iridiscencia verdosa o purpúrea en la mayor parte de las partes superiores (el brillo se vuelve más violeta en la parte superior de la espalda).
Cresta prominente en la corona y en la parte posterior del cuello.
Alas, con remeras primarias y secundarias negras. Las cubiertas alares inferiores, las axilares y una cantidad variable de las cubiertas alares superiores son blancas (esto varía según la edad)
El pico es negro en la base, con un moteado blanco carnoso, una banda azulada que se extiende por el centro y una mancha rosada cerca de la punta. Tiene una perilla de color negruzco a rojo oscuro en la base del pico que está engrosada, con carúnculas rojas de tamaño y número variables.
La piel alrededor y delante de los ojos está desnuda y presenta verrugas;
Presenta una extensa piel desnuda en la cara, alrededor y delante de los ojos, mayoritariamente negra con carúnculas de la frente y alrededor de la parte desnuda de la cara rojas.
El iris es marrón o marrón amarillento.
Tarsos y dedos del pie negros, con garras largas y afiladas (Baldassarre, 2014:263).
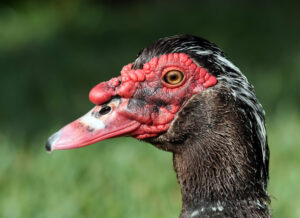
Hembra adulta: Plumaje similar al de los machos pero más apagado. Cara totalmente emplumada, no desnuda como en el macho. Las hembras son más pequeñas, tienen la cabeza completamente cubierta de plumas y carecen del engrosamiento en el pico. Ocasionalmente las hembras mayores tienen algunas carúnculas. Los tarsos y dedos del pie son de color negruzco apagado (del Hoyo et al., 1992:594; Baldassarre, 2014:263).
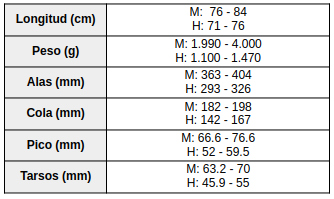
Juvenil: Coloración general del cuerpo similar a la de los adultos, pero es negro parduzco apagado excepto por las remeras terciarias y secundarias verdes. Las alas tienen poco o nada de blanco; si está presente, se reduce a una pequeña mancha en las cubiertas alares mayores. Presenta plumas negras dispersas en la región loral, y la piel detrás del ojo está densamente cubierta de plumas.
Las carúnculas del adulto apenas están esbozadas. Pico gris (Wetmore, 1926:71); (Wetmore, 1965:134; del Hoyo et al., 1992:594; Johnsgard, 2010:145).
Patito: Presenta un llamativo dibujo amarillo y marrón oscuro, así como una prominente mancha dorsal y manchas alares (Nelson, 1993:108). La frente, la garganta y los lados de la cabeza son amarillos, con una característica raya supraorbital. Los tarsos y dedos del pie son de un amarillo apagado, con un dibujo marrón grisáceo (Baldassarre, 2014:263).
Especies similares
Cairina moschata es una especie fácilmente reconocible y difícil de confundir con otras de su área de distribución. Aunque comparte las manchas blancas en las alas con Dendrocygna autumnalis, se diferencia de esta por su mayor tamaño, plumaje predominantemente oscuro y ausencia del pico rojo y los tarsos largos y rosados característicos de aquella. Asimismo, puede presentar cierta semejanza morfológica con Sarkidiornis melanotos, aunque esta última se distingue por la coloración clara de la cabeza, el cuello y las partes inferiores, así como por sus alas completamente oscuras (Eitniear et al., 2020).
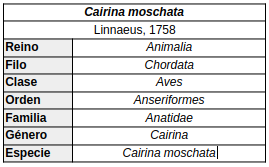
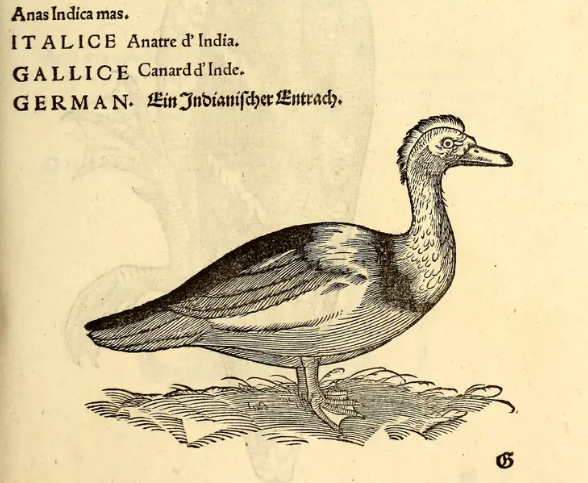
El género Cairina fue establecido por Fleming en 1822, con Anas moschata Linnaeus, 1758, como especie tipo. La descripción original de esta especie indicaba India como localidad tipo, mientras que Brasil fue propuesta posteriormente como localidad sustitutiva por Berlepsch y Hartert (1902). Asimismo, se ha propuesto recientemente su inclusión en la tribu Anatini.
Monotípica: (Carboneras, 1992:594; Eitniear et al., 2020). (Anteriormente, el pato de alas blancas (Asarcornis scutulata), originario del sudeste asiático, también se incluía en el género Cairina. Sin embargo, los estudios posteriores demostraron que esta especie mantiene un parentesco lejano con Cairina moschata, lo que justificó su exclusión y la consideración del género como monotípico (González et al., 2009:310).
Sus relaciones filogenéticas continúan sin estar completamente resueltas. Los análisis basados en secuencias de ADN mitocondrial y nuclear señalan que Cairina constituye un grupo hermano del género Aix (Johnson & Sorenson, 1999:795; González et al., 2009:310; Bulgarella et al., 2010:186).
Sin embargo, la posición filogenética del clado formado por Cairina + Aix sigue siendo objeto de discrepancias. Johnson y Sorenson (1999:795) y González et al. (2009:314) propusieron que ambos géneros constituyen un grupo hermano de la tribu Tadornini. Por el contrario, Bulgarella et al. (2010:193) no encontraron evidencias de dicha relación y situaron el clado Cairina + Aix en una posición basal respecto a un conjunto amplio de anátidas, entre las que se incluyen los géneros Anas y Aythya, además de otros taxones.
El registro paleontológico aporta información sobre la distribución histórica de Cairina moschata. Wetmore (1956:327) recuperó diversos restos óseos de esta especie en Panamá, cuya datación permitió situarlos en el Pleistoceno superior. Asimismo, se han identificado restos de la misma cronología en Brasil, lo que sugiere que la especie presentaba una distribución geográfica amplia durante este periodo. Por otra parte, las evidencias arqueológicas documentan también su presencia en Ecuador (Hesse, 1980:139).
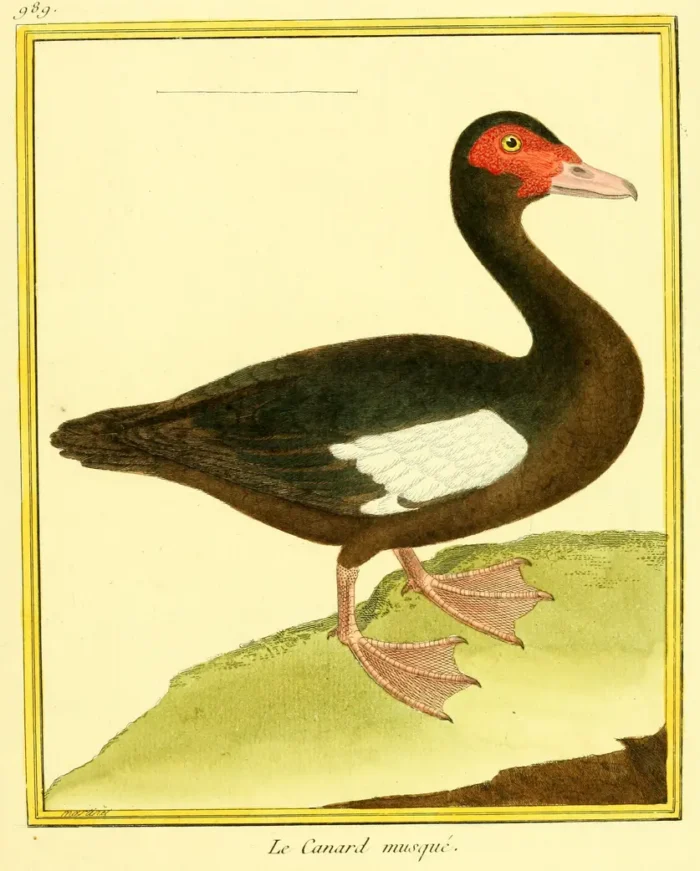
El Pato Real (Cairina moschata) es una especie de gran tamaño, robusta, caracterizada por su plumaje predominantemente negro y una marcada coloración blanca en las cubiertas alares, especialmente visible durante el vuelo, cuando contrasta con el tono oscuro del cuerpo. Su distribución natural se extiende desde el extremo sur de Texas y el norte de México hasta el norte de Argentina (Donkin, 1989). Habita principalmente en ríos, lagunas, estanques y pantanos, así como en ambientes de selvas y bosques tropicales y subtropicales, mostrando preferencia por cuerpos de agua costeros próximos a zonas boscosas. Aunque ocasionalmente se alimenta en espacios abiertos, suele regresar a los ambientes forestales para descansar y posarse (Johnsgard, 1976:163; Eitniear et al., 2020).
Se trata de una especie de hábitos parcialmente arborícolas, que utiliza los árboles tanto para descansar como para nidificar, mediante el aprovechamiento de cavidades naturales y cajas nido. Presenta un comportamiento generalmente arisco, moderadamente gregario y sedentario, aunque puede efectuar desplazamientos regionales de considerable amplitud como respuesta a periodos de sequía o a las crecientes de los cuerpos de agua (Contreras et al., 2014:97). En cuanto a su alimentación, mantiene una dieta omnívora y variada, compuesta por granos, vegetación acuática, frutos, semillas y frutos secos, así como pequeños peces, insectos y cangrejos (Eitniear et al., 2020). Ambos sexos presentan un plumaje similar, con un marcado dimorfismo sexual en el tamaño, siendo los machos considerablemente más grandes que las hembras. Asimismo, la especie ha sido ampliamente domesticada y se encuentra tanto en poblaciones domésticas como asilvestradas, algunas de ellas establecidas en libertad fuera de su área de distribución original (Contreras et al., 2014:97; Donkin, 1989; Eitniear et al., 2020).
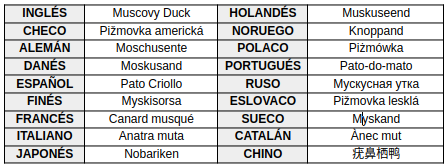
NOMBRES COMUNES: Pato real (Argentina, Bolivia, Colombia, Costa Rica, Ecuador, Honduras, México, Venezuela); Pato criollo (Chile, Perú, Uruguay, Puerto Rico); Pato doméstico (Cuba); Bragado (Paraguay); Pato do mato (Brasil); Ipé-guasú; ipé-guaicurú, ipé-real o ipé (Guaraní); Otros nombres: Mudo, Pato arisco, Pato grande, Pato picazo, Picazo, Turco (Chébez, 1996:121); (de la Peña, 2015:118); (de la Peña, 2025:146)
EN OTROS IDIOMAS
BREVES APUNTES HISTÓRICOS
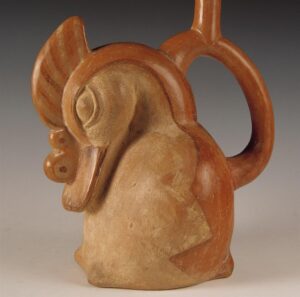
NOTA: La presencia de animales domesticados de origen sudamericano en los Andes septentrionales es anterior a las épocas incaica y española (Stahl, 2006:476; Terres, 1980:165). En Ecuador, la llegada de especies como la llama (Lama glama), el cuis (Microcavia australis) y la cairina se relaciona con antiguas redes de intercambio terrestres y marítimas. Los restos arqueológicos, aunque escasos, aparecen asociados a contextos de élite y al comercio del Muyu (Spondylus), lo que sugiere que estas especies pudieron circular como bienes de prestigio y contribuir a reforzar el poder de las élites locales.
A lo largo de su historia, la especie recibió numerosos nombres según las regiones y culturas: fallum o fallu en época colonial, joque en Perú, ñuñuma en quechua e ipeg en guaraní, además de pato real o criollo y otras denominaciones locales. En Europa se conoció como canard de Guinée, canard musqué o moscovia, mientras que Cairina moschata terminó consolidándose como su nombre científico (Monterrubio-Rico, 2006:2; Gamboa, 2019:125).
Su llegada a Europa se produjo a mediados del siglo XVI, probablemente a través de viajeros franceses o portugueses. La incertidumbre sobre su origen se mantuvo durante siglos: Buffon todavía reconocía ese desconocimiento en 1783 y Linneo no corrigió su atribución geográfica de India por Brasil hasta 1788 (Donkin, 1989:111-112). Desde Europa, el pato real se extendió posteriormente por Rusia, África, Asia y Oceanía, aunque los motivos concretos de su éxito y expansión siguen sin estar suficientemente explicados (Donkin, 1989:111-112).