El Sirirí de vientre negro (Dendrocygna autumnalis) se caracteriza por por caminar con destreza, mantener una postura erguida y correr y saltar con facilidad, especialmente durante los enfrentamientos con otros individuos. Sus características anatómicas, entre las que destacan la musculatura de las patas y las numerosas escamas plantares, favorecen la tracción y la locomoción sobre superficies elevadas, así como posarse y trepar. Se la ha observado posada en alambradas, líneas telefónicas y formaciones de Estopa de los árboles/Igaú/Tuyá rendivá (Tillandsia usneoides) (Rylander & Bolen, 1970:82; Rylander & Bolen, 1974a:241).
Rara vez nada en aguas profundas. Cuando lo hace, mantiene el cuello bajo, aunque adopta una postura más erguida cuando permanece alerta. Los adultos pueden nadar junto a sus crías, pero la natación disminuye considerablemente una vez finalizada la temporada reproductiva. En su lugar, las aves suelen vadear aguas poco profundas o tomar el sol en llanuras de barro (Rylander & Bolen, 1974a:241).
El vuelo se describe como aparentemente torpe, con desplazamientos en líneas o grupos, en lugar de las formaciones en cuña características de los gansos verdaderos. Durante el vuelo, el batido de las alas es lento y las patas se extienden más allá del cuerpo. La especie puede elevarse rápidamente desde el agua o la tierra y, al aterrizar, desciende bruscamente la cabeza y el cuello (Rylander & Bolen, 1974a:241).
La información disponible sobre los comportamientos de mantenimiento, como el acicalamiento del plumaje, el rascado de la cabeza y el baño, es limitada. McKinney (1965:120) describió los movimientos de confort de la tribu Dendrocygnini, entre los que se incluyen el estiramiento de un ala y una pata, de la mandíbula y de ambas alas. Los comportamientos de limpieza comprenden rascarse, limpiarse las patas y el pico y sumergir este último en el agua. Por su parte, el baño consiste en sumergir la cabeza y batir las alas.
El acicalamiento se realiza tanto en la orilla como mientras las aves están posadas. Asimismo, se han observado conductas de acicalamiento del plumaje y mordisqueo mutuo, posiblemente relacionadas con el mantenimiento del vínculo de pareja (Palmer, 1976:34).
Duermen o reposan de pie sobre una o ambas patas, con el cuello extendido hacia atrás y el pico entre las plumas escapulares, o bien con el cuello y el pecho apoyados contra el suelo. Durante estos periodos, pueden mantener los ojos abiertos o cerrados. También se ha registrado a la especie descansando durante el día entre jacintos de agua, en árboles y a lo largo de los márgenes de lagunas y humedales.
La actividad diaria varía según la etapa reproductiva y la edad de los individuos. En Texas, antes y durante la incubación, ambos miembros de la pareja dedican la mayor parte del día al descanso, el sueño y la alimentación, mientras que durante la noche predomina la búsqueda de alimento (Heins, 1984:17).
Según Heins (1984:17), durante la crianza, los progenitores permanecen alerta aproximadamente el 60 % del tiempo y dedican un 22 % a desplazarse. El tiempo restante se distribuye entre la alimentación, el descanso, el sueño y los comportamientos agonísticos. En los patitos, la actividad predominante es la alimentación, que representa el 62 % del tiempo, seguida de los desplazamientos (19 %) y del sueño y las actividades de mantenimiento (15 %). La holgazanería, los conflictos y otras actividades constituyen el 4 % restante. Además, se observan diferencias relacionadas con la edad: los individuos de entre siete y nueve semanas dedican más tiempo al descanso y menos a la alimentación que los de menos de entre 3 semanas y siete semanas.
Es una especie altamente gregaria que forma grandes bandadas durante todo el año. En las zonas donde es frecuente, estas agrupaciones pueden alcanzar los 1.000 individuos, aunque no se dispone de datos precisos sobre el tamaño habitual de las bandadas (Johnsgard, 2010:23).
Durante la temporada reproductiva, las parejas establecidas tienden a separarse de los grupos, mientras que los individuos errantes continúan observándose en bandadas. La especie también se asocia frecuentemente con el Sirirí colorado (D. bicolor), con el que forma agrupaciones mixtas. En los enfrentamientos agresivos, el Sirirí de vientre negro puede dominar al Sirirí colorado, mientras que suele ignorar a otras aves acuáticas que comparten su hábitat, como el Pato moteado o Texano (Anas fulvigula), el Pato cuchara boreal (Anas clypeata), la Pollona negra (Gallinula galeata) y la Gallareta americana (Fulica ardesiaca) (Palmer, 1976:36).
La agresividad intraespecífica se manifiesta mediante persecuciones, carreras intensas y enfrentamientos físicos. Los machos pueden morder y perseguir a otros individuos que se aproximan a su pareja. Las exhibiciones de amenaza presentan una postura similar a la de los gansos, caracterizada por la extensión de la cabeza y la apertura del pico (Bolen, 1973:32).
Durante las disputas entre individuos de las bandadas estivales, las aves pueden saltar hacia el oponente con las patas extendidas hacia delante y las alas levantadas. También se han observado vuelos de persecución en los que participan tres individuos, presumiblemente dos machos y una hembra. Estas conductas reflejan la presencia de interacciones agonísticas tanto en el contexto social general como en la defensa de la pareja.
Se considera predominantemente monógamo y sus vínculos pueden mantenerse durante varios años. La monogamia de por vida se ha inferido a partir de la recuperación, en el sur de Texas, de siete parejas anilladas en años consecutivos (Bolen, 1971a:385). La duración máxima documentada de un vínculo de pareja fue de cuatro años. No obstante, los individuos pueden formar una nueva pareja tras la pérdida de la anterior, y también se han registrado dos casos de separación de parejas, en los que los individuos se emparejaron con otros ejemplares en años sucesivos. Se desconoce la proporción de reproductores que experimenta estas separaciones (Delnicki, 1983:728).
La proporción de sexos registrada durante la primavera en Texas fue de 52 machos por cada 48 hembras (Bolen, 1967b:15). En cuanto a la formación de parejas, se ha propuesto que el emparejamiento podría producirse durante el invierno, antes del regreso a las zonas de nidificación. Esta hipótesis se fundamenta en la ausencia de observaciones de cortejo y en la elevada frecuencia de agrupaciones de dos individuos en la población primaveral del sur de Texas (Bolen, 1967b:19).
Las exhibiciones de cortejo de ambos sexos son sencillas y presentan similitudes con las de los cisnes. Entre ellas destacan el estiramiento del cuello hacia delante, en posición casi horizontal, y la inmersión de la cabeza bajo el agua, seguida de una retirada rápida que proyecta agua sobre el dorso. También se han descrito movimientos mutuos de estiramiento del cuello, inmersión de la cabeza y buceo como parte de las interacciones que preceden a la formación de parejas (Bolen et al., 1964:78; Palmer, 1976:34).
La formación y el mantenimiento del vínculo incluyen conductas de proximidad y acicalamiento mutuo. Bolen (1971a:385) documentó seis casos en los que las parejas mantuvieron su vínculo durante al menos dos años consecutivos y señaló que las tendencias de regreso al lugar de origen parecían igualmente marcadas en ambos sexos.
No se han registrado despliegues pre-copulatorios. La cópula suele producirse de pie en la orilla y puede ir precedida de movimientos asociados con la bebida. El macho monta rápidamente a la hembra, se coloca sobre su espalda y la sujeta por la nuca. El acto dura cinco segundos o menos. Tras la cópula, ambos individuos pueden pavonearse uno junto al otro, con el pecho hinchado y la cabeza y el cuello curvados en forma de «S». Las alas rara vez se levantan y, posteriormente, ambas aves se acicalan y se lavan vigorosamente (Meanley & Meanley, 1958b:96; Bolen, 1967b:20).
Generalmente anida en cavidades de árboles situadas a distancias variables del agua, aunque también se han encontrado nidos en el suelo, entre la vegetación (Rylander & Bolen, 1974a:241).
Durante la crianza, los adultos mantienen una elevada proporción de actividad de vigilancia, mientras que los individuos jóvenes dedican la mayor parte de su tiempo a alimentarse y desplazarse (Heins, 1984:17). Los vuelos de alimentación pueden llevar a las aves hasta pastizales o campos con rastrojos de grano, en ocasiones situados a distancias considerables de los cuerpos de agua (Bolen & Forsyth, 1967:46).
En Argentina, la especie forma bandadas de varios individuos, aunque también se observa en parejas o en grupos de hasta 30 ejemplares. Presenta una postura erguida cuando permanece de pie, nada con poca frecuencia y se posa habitualmente en los árboles, incluidos ejemplares secos. Habita esteros, bañados y lagunas, preferentemente en ambientes arbolados. También se registra en represas, a lo largo de caminos y en las orillas de los cuerpos de agua, donde puede permanecer posada o desplazarse en vuelo. En ocasiones, forma agrupaciones junto con el Sirirí pampa (Dendrocygna viduata) (de la Peña, 2015:112; de la Peña, 2025:104; Di Giácomo, 2005:232). Según las notas de campo, cuando los adultos tienen pichones muy pequeños, realizan maniobras de distracción frente a posibles amenazas, simulando estar heridos mediante desplazamientos a pie y arrastrando las alas caídas. Asimismo, en febrero de 1997 se encontró un ejemplar muerto con un ala rota debajo de una torre metálica de un pararrayos. Se planteó como hipótesis que el ave hubiera colisionado durante la noche anterior con los cables tensores que sostenían la estructura.
Depredación: Entre los principales depredadores de huevos en norte de América se encuentran las serpientes: Serpiente rata de Texas (Elaphe obsoleta lindheimeri) y la Serpiente toro (Pituophis catenifer), que frecuentan los nidos en cavidades y las cajas nido desprotegidas, así como los Mapaches (Procyon lotor). Las Hormigas de fuego (Solenopsis xyloni) pueden matar a los patitos durante la eclosión. Otros posibles depredadores de las crías son peces como la Lubina de boca grande (Micropterus salmoides), los Siluros (Pylodictis olivaris), los Pejelagartos (Lepisosteus spp.) y las tortugas. También se ha señalado al búho cornudo (Bubo virginianus) como posible depredador de adultos (Delnicki & Bolen, 1977:275; Bolen, 1967b:98).
Frente a las amenazas, los adultos pueden abandonar temporalmente el nido y sobrevolarlo mientras vocalizan. Cuando las crías están presentes, realizan exhibiciones de distracción que simulan lesiones en las alas, generalmente ejecutadas por la hembra mientras el macho permanece con los pichones (Bolen, 1967b:99).
VOCALIZACIONES
Dendrocygna autumnalis es una especie muy vocal, cuya llamada más característica consiste en un silbido agudo, suave y musical de cuatro sílabas, con la primera prolongada y descendente. Ha sido transcripto de distintas maneras, como «pe-che-che-ne», «pee-chi-chi-nee», «weeseeweesee» y «peya-cha-cha-chanee». También se describe como un silbo áspero y agudo, semejante a «Jeiiihh. Ji.ji.ji» (Palmer, 1976:31; James & Thompson, 2020; de la Peña, 2015:112; de la Peña, 2025:104; Straneck, en de la Peña, 2016).
Vocaliza tanto durante el vuelo como cuando permanece de pie o nadando. En vuelo también produce otras llamadas, transcritas como «chit-chit-chit» y «cheet-cheet». Al levantar vuelo emite una nota aislada o una serie de sonidos similares, mientras que las series más cortas funcionan como llamadas de alarma. Durante las exhibiciones de distracción produce un sonido frenético «oo-eek». Cuando descansa o permanece inactiva, suele emitir sonidos gorjeantes (Palmer, 1976:31; James & Thompson, 2020).
Aunque su voz es más musical que la de otros patos silbadores, presenta menor volumen y proyección que los chillidos del Sirirí colorado. Las vocalizaciones también cumplirían una función importante en la comunicación durante los desplazamientos nocturnos (Palmer, 1976:31; James & Thompson, 2020).
ALIMENTACIÓN
Presenta una dieta predominantemente vegetariana y se alimenta en hábitats terrestres o en cuerpos de agua poco profundos. Su alimentación se basa principalmente en hierbas, cariópsides, aquenios y otras semillas, incluidos los granos de cereales. El consumo de materia vegetal se realiza mediante el picoteo o la recolección directa de semillas y otras partes de la vegetación. En este sentido, Sennett, en 1878, describió individuos en el valle inferior del río Grande que retiraban la cáscara del maíz (Zea mays) y extraían los granos directamente de la mazorca. Aunque los vegetales constituyen el componente principal de su dieta, ocasionalmente consume pequeños invertebrados, como moluscos e insectos (Rylander & Bolen, 1974b:86; Carboneras, 1992:577). Según Kramer & Euliss (1986), los alimentos de origen animal constituyen menos del 3 % de la dieta. Los componentes vegetales representan la fracción predominante, especialmente las hierbas y las semillas.
Principales alimentos ingeridos
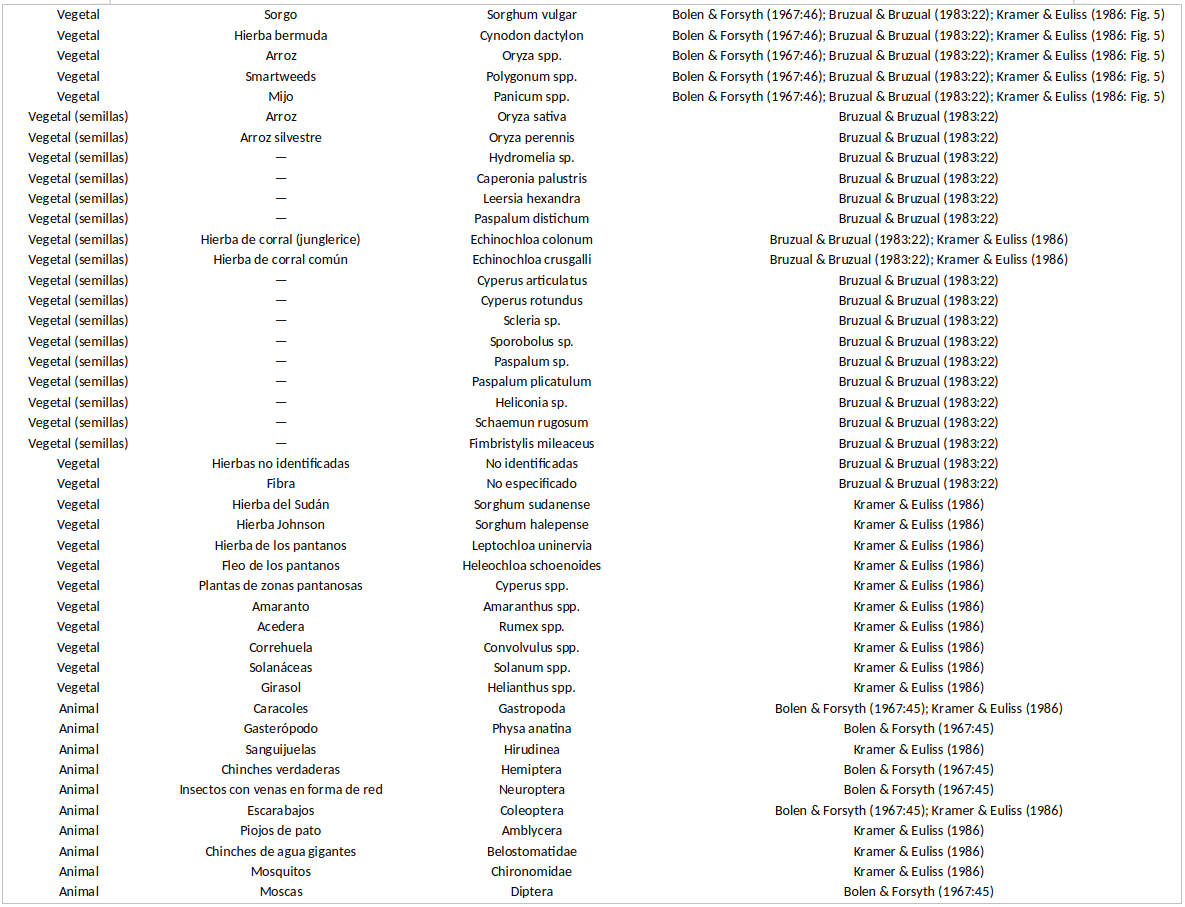
La especie presenta adaptaciones morfológicas del pico relacionadas con el pastoreo y la obtención de alimento vegetal. Entre estas destacan el maxilar de lados paralelos, una uña menos pronunciada, las narinas situadas en una posición más proximal y un mayor grosor del hueso y del tegumento en el extremo distal del maxilar (Rylander & Bolen, 1974b:86).
En cuanto al comportamiento asociado a la ingestión de agua, bebe agua dulce elevando la cabeza y el cuello. Se desconoce si consume agua salada (Carboneras, 1992:577).
REPRODUCCIÓN
La biología reproductiva de Dendrocygna autumnalis ha sido estudiada principalmente en Texas, donde se dispone de información sobre nidificación, parasitismo de nidadas y desarrollo de las crías. Una parte importante de estos conocimientos procede de investigaciones realizadas mediante programas de instalación de cajas nido (James & Thompson, 2020; Bolen, 1967b; Cain, 1976:124).
En Norteamérica se reproduce principalmente en las regiones costeras de México y el sur de Texas. Forma vínculos de pareja que pueden mantenerse durante toda la vida y alcanza la madurez reproductiva durante su primer año. No se dispone de información precisa sobre la formación de las parejas, aunque se presume que ocurre durante el invierno, antes de la migración primaveral (James & Thompson, 2020).
La selección del lugar de nidificación involucra a ambos integrantes de la pareja. Las aves inspeccionan las posibles cavidades acercándose a pie o volando; habitualmente se aproximan desde arriba y extienden el cuello hacia el interior para examinar sus características. La construcción del nido comienza recién con la puesta de los huevos (James & Thompson, 2020).
Nidifica principalmente en cavidades de árboles, aunque también puede hacerlo en el suelo. En el sur de Texas utiliza ambientes de matorral con Ébano (Pithecellobium flexicaule), Mezquite, Retama (Parkinsonia aculeata), Huizache (Acacia farnesiana) y Cactus. Las cavidades se originan naturalmente por roturas de ramas, enfermedades o procesos de descomposición, y pueden encontrarse tanto en árboles vivos como muertos, entre ellos robles, ébanos, sauces (Salix spp.), olmos (Ulmus spp.), Mezquites y Almez (Celtis spp.). La distancia al agua no parece ser un factor determinante: se registró que el 30 % de los nidos arbóreos se encontraba a más de 457 m de ella (Meanley & Meanley, 1958:94; Bolen, 1967b:73/79; Johnsgard, 2017:44).
Los nidos terrestres se ubican entre la vegetación baja, compuesta por sauces, mezquites y mimosas (Mimosa spp.), generalmente bajo una cobertura protectora de cactus espinosos (Opuntia spp.) o arbustos. Pueden consistir en una simple depresión del suelo o en un cuenco poco profundo elaborado con hierbas entrelazadas. También se han registrado nidos en frondas de palmeras, chimeneas, tubos de escape de desmotadoras de algodón y suelos desnudos de palomares (Bolen, 1967b:82; Markum & Baldassarre, 1989:707).
En las cavidades no incorpora plumón ni construye un nido elaborado: los huevos se depositan directamente sobre los restos presentes. En las cajas nido con virutas de madera, la hembra puede formar una pequeña depresión. También utiliza cajas nido para reproducirse (James & Thompson, 2020; de la Peña, 2025:105; Johnsgard, 2017:44).
Los huevos son elípticos u ovalados, de color blanco a blanco cremoso; recién puestos presentan una superficie finamente picada, que se vuelve lisa y brillante durante la incubación. En Texas se registró una puesta media de 13,4 huevos (± 2,1 DE), con un rango de 9 a 18 huevos en 58 nidadas. El tamaño puede aumentar debido al frecuente parasitismo de nidos por individuos de la misma especie (Bolen, 1967b:51; James & Thompson, 2020; Johnsgard, 2017:44).
La puesta comienza luego de la selección del sitio y generalmente se realiza al atardecer, a razón de un huevo diario. El macho acompaña a la hembra hasta el nido en aproximadamente el 90 % de las ocasiones, mientras que esta permanece allí alrededor de cinco minutos durante la postura. La incubación comienza cuando la hembra pasa la noche en el nido después de poner un huevo y, habitualmente, se inicia entre dos y tres días antes de completar la puesta. Ambos progenitores alternan turnos de incubación de aproximadamente 24 horas. El período de incubación es de unos 28 días, aunque se han señalado intervalos de 26 a 31 días (Bolen, 1967b:39; Carboneras, 1992:577; Johnsgard, 2017:44/45).
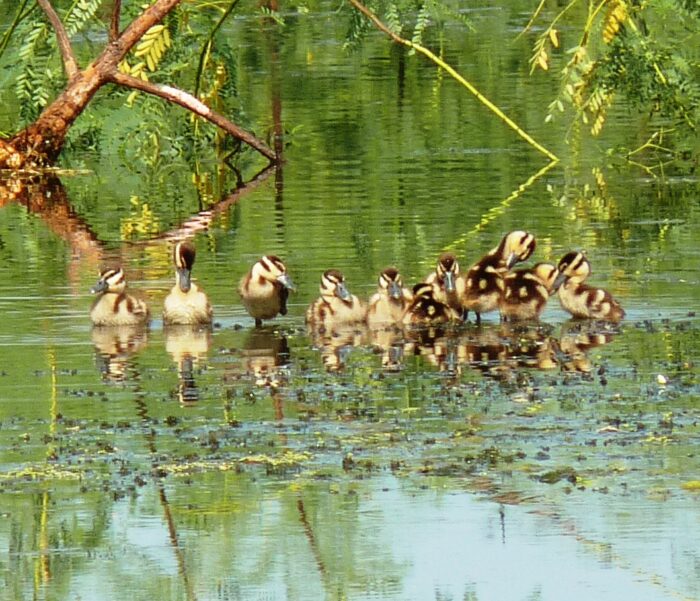
Los pichones son precociales, nidífugos y capaces de alimentarse por sí mismos. Al nacer tienen los ojos abiertos y están cubiertos de plumón negro y amarillo: presentan el dorso y las alas predominantemente negros, con manchas amarillas, mientras que la cara, las partes inferiores y las patas muestran tonalidades amarillas. Su masa corporal media al nacer es de 30,8 g (± 1,78 EE; n = 30) (Cain, 1968, en James & Thompson, 2020).
La descripción del plumón señala semejanzas con la de Dendrocygna viduata, aunque en D. autumnalis las partes superiores son pardo negruzcas, las inferiores presentan un amarillo más definido y suele observarse una mancha pardo negruzca en la región anterior del cuello (Navas, 1977, en de la Peña, 2025:232).
Los pichones abandonan el nido uno o dos días después de la eclosión. Cuando nacen en cavidades, pueden trepar por sus paredes y saltar al suelo. Ambos progenitores participan en su cuidado y los mantienen bajo su protección durante las primeras etapas, ya que los recién nacidos todavía no pueden regular su temperatura corporal; esta capacidad se desarrolla aproximadamente a los nueve días. El período de empollamiento dura alrededor de 12 días, aunque los jóvenes pueden permanecer junto a sus padres hasta cuatro meses después de adquirir el vuelo (Palmer, 1976:29; Cain, 1972:483; Audubon, s. f.).
El crecimiento corporal es rápido entre los cinco y los treinta días de vida. El plumón juvenil comienza a desarrollarse aproximadamente entre los 10 y 13 días, y las timoneras aparecen entre los 25 y 28 días. Los jóvenes adquieren la capacidad de volar entre los 53 y 63 días, aunque otras observaciones sitúan este momento entre los 56 y 63 días. (Cain, 1968 en James & Thompson 2020; Cain, 1972:484; Palmer, 1976:29; Carboneras, 1992:577; Audubon, s. f.; Johnsgard, 2017:46).
En el agua, un adulto conduce a los pichones mientras el otro permanece detrás del grupo. Ante una amenaza, uno de los progenitores puede alejarse para distraerla y acosarla, mientras el otro guía a las crías hacia un sitio seguro. También se ha observado que los pichones trepan sobre el dorso de sus padres, comportamiento semejante al de los cisnes (Bolen et al., 1964:78; James & Thompson, 2020).
En Argentina se han registrado puestas de hasta 18 huevos, de forma ovoide y color crema (de la Peña, 2025:105). En un nido hallado en Corrientes el 19 de diciembre de 1996 se encontraron 16 huevos frescos, depositados directamente sobre la viruta acumulada en una cavidad de 85 cm de profundidad, ubicada en la parte superior del tronco seco y sin hojas de una palmera pindó (*Syagrus romanzoffiana*), a 8 m del suelo y lejos del agua. Los huevos midieron en promedio 50,1 × 36,9 mm (rango: 47,4-52,4 × 35,5-37,8 mm; n = 16) y pesaron en promedio 38,1 g (rango: 33,0-39,7 g; n = 16) (Di Giacomo, 2005:232).
Se localizaron nidos y/o pichones en Formosa, Chaco, Corrientes, Córdoba y Buenos Aires, entre octubre y mayo (de la Peña, 2015:112; de la Peña, 2025:104). (Tabla nidificación). Se han documentado parejas acompañadas por grupos de entre tres y 17 pichones, principalmente entre enero y marzo (Di Giácomo, 2005:232).
La biología reproductiva de la especie es relativamente bien conocida en otras regiones de su extensa distribución, pero la información específica sobre su nidificación en Argentina ha sido escasa. El registro del nido con 16 huevos hallado en Corrientes constituye uno de los primeros datos documentados para el país (Carboneras, 1992:577; Di Giacomo, 2005:232). Para ampliar la información sobre su reproducción en Argentina, se señala también el trabajo de Montani et al. (2019:12).
Parasitismo de nidos: El parasitismo intraespecífico de nidadas es frecuente, especialmente en sitios con disponibilidad de cajas nido. Su frecuencia resulta difícil de establecer porque los huevos de los individuos parásitos son similares a los de la pareja propietaria. Este comportamiento puede afectar el éxito reproductivo. Delnicki (1973, en James & Thompson 2020) encontró que los nidos con puestas múltiples producían un 94 % más de pichones que aquellos con una única puesta, aunque el éxito de eclosión de los huevos también se veía afectado. Se han registrado nidos compartidos que contienen entre 50 y 60 huevos o incluso más (James & Thompson, 2020; Audubon, s. f.; Johnsgard, 2017:45).