• Chajá | Conservación


    ESTADO DE CONSERVACIÓN: PREOCUPACIÓN MENOR

    La Chauna torquata (Chajá) es considerado una especie de “Preocupación Menor” por BirdLife International debido a su amplia distribución geográfica, gran tamaño poblacional y tendencia poblacional estable, factores que lo mantienen lejos de los umbrales de amenaza establecidos (BirdLife International 2010). En este sentido, no cumple criterios de vulnerabilidad asociados a reducciones significativas de distribución, población o declives superiores al 30 % en el corto o mediano plazo, lo que refuerza su clasificación como especie no amenazada (Brady, 2020).
    Aunque no se encuentra en riesgo, esta especie presenta interacciones relevantes con la actividad humana: puede ser domesticada y es utilizada como animal de guardia debido a su potente vocalización, mientras que en contextos agrícolas es frecuentemente considerada una especie problemática por su comportamiento gregario. Asimismo, la desecación de humedales afecta sus áreas de reproducción, aunque la especie muestra cierta capacidad de adaptación a estas modificaciones ambientales (Carboneras, 1992:533).
    En relación con sus depredadores, se han registrado diferentes amenazas según las etapas del ciclo de vida. En estado adulto, se ha documentado la depredación por el zorro pampa o gris en Maipú, Buenos Aires (Argerich, E., 31/12/2017; EcoRegistros 2019). En etapas tempranas, los huevos y pichones pueden ser depredados por la musurana en Formosa (Gallardo et al., 2006) por el curiyú en Formosa (Waller et al., 2007).

    En Argentina, a pesar de no estar considerada una especie amenazada (López Lanús et al., 2008:46), enfrenta múltiples presiones antrópicas que pueden generar consecuencias significativas sobre sus poblaciones. Entre ellas se destaca la caza sostenida, que ha provocado disminuciones locales evidentes en áreas de persecución activa y un descenso general en regiones como la Provincia del Chaco (Contreras et al., 1990). Además, su sensibilidad a las modificaciones drásticas del hábitat, particularmente aquellas vinculadas a la alteración de recursos hídricos, constituye un factor crítico. También se señala su exposición a los efectos directos e indirectos de agroquímicos debido a su frecuente presencia en arrozales, lo que incrementa su vulnerabilidad ambiental y refuerza la necesidad de medidas de protección legal (Contreras et al., 2014:74).
    Finalmente, las estimaciones poblacionales globales para la Argentina indican un rango aproximado entre 100.000 y 1.000.000 de individuos (Delaney & Scott, 2002; Di Giácomo et al., 2007:496), lo que confirma su amplia abundancia relativa a escala regional.

    Estado de conservación en Argentina (SIB)
    No Amenazada (NA): según AA y SAyDS, 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable). López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina. 1 ed. AOP: Buenos Aires, Argentina
    No Amenazada (NA): según MADS y AA, 2017 (Ministerio de Ambiente y Desarrollo Sustentable de la Nación y Aves Argentinas). Categorización de las Aves de la Argentina según su estado de conservación. Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas. 146 p. 2017
    Preocupación Menor (LC): según UICN (API) (Unión Internacional para la Conservación de la Naturaleza). Lista Roja de la UICN publicada en https://www.iucnredlist.org. Actualización en tiempo real

  • Chajá | Distribución


    © Animalia. Algunos derechos reservados

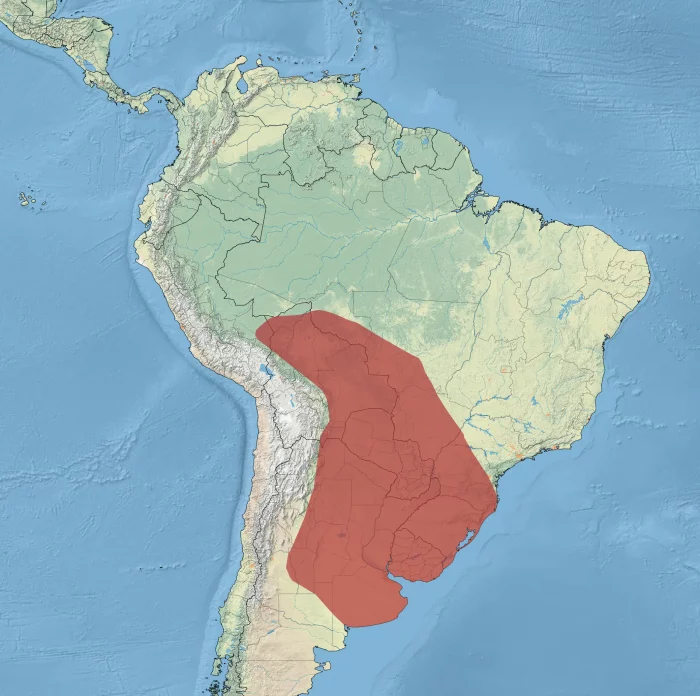
    Es una especie endémica de Sudamérica (Contreras, 2014:75), cuya distribución se extiende principalmente por la Cuenca del Plata y regiones adyacentes, con registros aislados en la Amazonia peruana (Servat & Pearson, 1991:92; Contreras, 2014:75). Su rango de distribución comprende Bolivia, Paraguay, Uruguay, Argentina y Brasil (Sick, 1997:242; Olrog, 1979:46).
    En Bolivia, la especie se distribuye ampliamente en el norte y este de los departamentos de Beni, Santa Cruz y Tarija (Blake, 1977:211), con presencia general desde el país hacia el sur hasta el norte de Argentina y hacia el este hasta los estados brasileños de Mato Grosso y Rio Grande do Sul (Davis et al., 1994:76; Brumfield et al., 2004:385). Asimismo, se ha registrado en Paraguay y Uruguay (Gore y Gepp, 1978), así como en el sur de Brasil, desde Mato Grosso hasta el oeste de São Paulo y Rio Grande do Sul (Blake, 1977:211; Sick, 1997:242). En Argentina, su distribución alcanza desde las regiones septentrionales hasta las provincias de Mendoza, La Pampa y Buenos Aires (Blake, 1977:211; Olrog, 1979:46; Josens et al., 2009:9).
    Existen además registros erráticos en el sudeste de Perú (Parker, 1982:478; Servat & Pearson, 1991:92), lo que ha llevado a señalar su presencia ocasional en la Amazonia peruana (Contreras, 2014:75).
    La especie habita preferentemente ambientes palustres, marismas y lagunas con abundante vegetación acuática. En Rio Grande do Sul se la considera un residente común en humedales y lagos con vegetación emergente, particularmente en las zonas litorales y en sectores occidentales de la depresión central del estado (Belton, 1984:477).
    Aunque generalmente se considera una especie no migratoria, estudios terrestres y aéreos realizados en Rio Grande do Sul evidenciaron fluctuaciones estacionales en la abundancia. Las poblaciones costeras disminuyen entre julio y noviembre, coincidiendo con incrementos en localidades del interior, lo que sugiere la existencia de movimientos locales o desplazamientos regionales (Fontana et al., 1994).

    HÁBITAT

    La especie se encuentra estrechamente asociada a ambientes de humedales tanto tropicales como subtropicales, incluyendo lagos, marismas, lagunas, esteros y pantanos, generalmente en áreas con vegetación acuática y, en algunos casos, con presencia de árboles dispersos (Brady, 2020; Olrog, 1979:46).
    Habita una amplia variedad de humedales continentales, tales como lagunas, esteros, bañados y sabanas húmedas, así como bosques abiertos e inundados y arrozales (Contreras et al., 2014:74; de la Peña, 2025:86). Asimismo, puede utilizar ambientes antropizados o modificados, como campos inundados y áreas agrícolas.
    A escala regional, se ha documentado su presencia en lagunas, bañados, campos y diques en la provincia de Córdoba, con excepción de la región altoserrana, donde no se registra. Las mayores densidades poblacionales se concentran en las zonas este, centro y sur de dicha provincia (Salvador et al., 2017:16).
    En Argentina, también ocupa una diversidad de microhábitats acuáticos como represas, orillas de caminos, bañados, esteros y sectores con aguas abiertas en riachos, incluyendo pozas y claros (Di Giácomo, 2005:230). En conjunto, estos registros confirman su fuerte dependencia de sistemas de humedales y su amplia tolerancia a distintos tipos de cuerpos de agua someros (Olrog, 1979:46; Contreras et al., 2014:74).
    Ecorregiones: Pampa, Chaco y Delta e Islas del Paraná , Espinal  Esteros del Iberá y Yungas (Barnett & Pearman, 2001:30)

    DISTRIBUCIÓN GEOGRÁFICA EN ARGENTINA

    En Argentina se distribuye desde el norte del país hasta el sureste de San Juan y abarcando también el este de Mendoza, La Pampa y Río Negro (de la Peña, 2025:91). En términos generales, ocupa gran parte del territorio argentino no serrano, alcanzando las provincias de Buenos Aires, La Pampa, Córdoba, San Luis, Mendoza y Río Negro (Contreras, 2014:75).
    Son residentes durante todo el año. En la Reserva El Bagual (Formosa), la especie ha sido considerada residente permanente, con registros correspondientes a todos los meses del año (Di Giácomo, 2005:230). Los antecedentes para la provincia de Formosa incluyen las observaciones realizadas por Wetmore (1926) entre el 10 y el 21 de agosto de 1920 en el Riacho Pilagá, donde se colectó un macho adulto el 16 de agosto, así como un ejemplar obtenido por la expedición Krieg en Lapango durante septiembre de 1925 (Laubmann, 1930). Posteriormente, Narosky y Martelli (1995) la señalaron como una especie común en la estancia Clarín durante octubre de 1991. Su presencia también ha sido documentada en el Parque Nacional Río Pilcomayo (Pujalte et al., 1995; López Lanús, 1997) y en la Reserva Natural Formosa (Chebez et al., 1998).
    De acuerdo con registros más recientes, la especie se encuentra presente en diecinueve provincias: Buenos Aires, Catamarca, Chaco, Córdoba, Corrientes, Entre Ríos, Formosa, Jujuy, La Pampa, La Rioja, Mendoza, Misiones, Río Negro, Salta, San Juan, San Luis, Santa Fe, Santiago del Estero y Tucumán (Lucero, 2020:26; de la Peña, 2019). Dentro de este amplio rango de distribución, se ha documentado su nidificación en al menos doce provincias, incluyendo Jujuy, Salta, Formosa, Chaco, Santiago del Estero, Corrientes, Santa Fe, Córdoba, Entre Ríos, San Luis, Buenos Aires y La Pampa (Salvador, 2017).

    Citas y observaciones en las provincias

  • Chajá | Comportamiento


    El Chajá (Chauna torquata) es una especie de hábitos predominantemente terrestres y diurnos. Aunque posee capacidad para nadar, generalmente prefiere desplazarse caminando, comportamiento que ha llevado a describirlo como un ave terrícola y caminadora (Brady, 2020; Di Giacomo, 2005:230). Su desplazamiento terrestre se caracteriza por movimientos lentos y un andar majestuoso, acompañado de una postura erguida, una actitud vigilante y una apariencia de continuo estado de alerta (de la Peña, 2025:86; Saporiti, 1947:434). Belton (1984:479) señala que los individuos suelen mantener el cuello vertical, rasgo que refuerza esta impresión de vigilancia permanente.

    Se observa con mayor frecuencia en parejas, condición que diversos autores consideran característica de su comportamiento habitual (Belton, 1984:479; Contreras et al., 2014:74; Salvador et al., 2017:16). Saporiti (1947:434) destaca incluso una marcada tendencia a la vida en pareja, señalando que los individuos suelen mantener una existencia independiente y monógama. No obstante, fuera de la temporada reproductiva pueden reunirse en grupos de tamaño variable y formar grandes concentraciones. Carboneras (1992:530) menciona que durante este período la especie se vuelve social, alimentándose en bandadas de hasta 100 individuos y descansando en grupos. Asimismo, Belton (1984:479) registró una concentración de 181 ejemplares en unas pocas hectáreas, mientras que Di Giacomo (2005:230) señala agrupaciones dispersas que superan el centenar de individuos durante el otoño o después de intensas lluvias en bañados y grandes esteros. Sick (1997:242) también observó grupos de individuos aparentemente no reproductivos que deambulan pacíficamente en distintas épocas del año. En contraste, Salvador et al. (2017:16) indican que los grupos de más de dos individuos son poco frecuentes, generalmente integrados por cuatro a ocho ejemplares.

    La especie frecuenta ambientes abiertos asociados a humedales. Habitualmente se la observa vadeando en marismas poco profundas o descansando en charcas y pantanos de escasa profundidad (Belton, 1984:479; Carboneras, 1992:530; Sick, 1997:242). También utiliza con frecuencia árboles, arbustos y otras estructuras elevadas como sitios de reposo, especialmente para dormir o vigilar el entorno (Belton, 1984:479; de la Peña, 2025:86; Di Giacomo, 2005:230; Sick, 1997:242). Cuando se siente amenazada, suele refugiarse en las copas de los árboles, desde donde emite fuertes vocalizaciones de alarma (Brady, 2020).

    El vuelo constituye una de las capacidades más notables de la especie. Aunque el despegue puede parecer dificultoso debido a su tamaño corporal, una vez en el aire demuestra gran habilidad para el planeo (de la Peña, 2025:86; Brady, 2020). Durante el ascenso realiza vigorosos aleteos que producen un ruido característico, alcanzando posteriormente alturas considerables gracias al aprovechamiento de corrientes térmicas (Belton, 1984:479; de la Peña, 2025:86). Gibson (1880:166) describió su vuelo como lento y compuesto por amplios y potentes movimientos alares. Di Giacomo (2005:230) observó que frecuentemente comparte las corrientes térmicas con otras aves de gran porte, como los Jabirúes (Jabiru mycteria), Tuyuyúes (Mycteria americana) y Jotes Cabeza Negra (Coragyps atratus). Sin embargo, Sick (1997:242) señala que durante el vuelo puede maniobrar torpemente, manteniendo las patas parcialmente colgantes.

    Finalmente, se ha documentado un caso de depredación sobre la especie: en el estómago de una musurana (Boiruna maculata) colectada en la REB y depositada en la colección de la FML se halló un pichón de Chajá de aproximadamente una semana de vida (Gallardo et al., en prensa), registro citado por Di Giacomo (2005:230).


    VOCALIZACIONES

    Las vocalizaciones del Chajá (Chauna torquata) constituyen uno de los rasgos más distintivos de la especie. Su voz es extremadamente potente, de gran alcance y fácilmente audible a largas distancias; de hecho, se ha señalado que sus llamados, semejantes a los de los gansos, pueden escucharse a más de tres kilómetros (Sick, 1997:242; Belton, 1984:477). Asimismo, las vocalizaciones han sido descritas como fuertes, poco melodiosas y de carácter trompeteante (Brady, 2020). Los individuos emiten llamados intensos cuando son perturbados y pueden vocalizar incluso durante la noche (Belton, 1984:479; Di Giacomo, 2005:230). La singularidad de estos sonidos es tal que, según Saporiti (1947:434), el nombre vulgar de la especie deriva de una onomatopeya inspirada en su característico grito. Este autor también destaca el comportamiento vigilante y desconfiado del Chajá, así como su predisposición a respuestas defensivas o agresivas.

    Ambos sexos participan activamente en la emisión de llamados, frecuentemente mediante duetos que pueden producirse tanto cuando las aves se encuentran posadas como durante el vuelo (Belton, 1984:477; de la Peña, 2025:86). Según de la Peña (2025:86), mientras uno de los integrantes de la pareja emite un potente “AHA”, el otro intercala un agudo “Ogik”, produciéndose ambas vocalizaciones de manera casi simultánea. De forma similar, Sick (1997:242) describe un intercambio vocal durante el vuelo en el que el macho emite un suave “ta-há” y la hembra responde con un fuerte “TÜ-HÜ”.

    Existen diferencias sexuales apreciables en las vocalizaciones. Belton (1984:477) indica que ambos sexos poseen voces muy fuertes y de gran alcance, aunque el macho presenta un tono más grave, mientras que la hembra emite llamados más agudos. Brady (2020), citando a Sick (1997:242) y Belton (1984:477), señala igualmente que las vocalizaciones de la hembra son más débiles o más agudas que las del macho. Según Belton (1984:477), el macho produce un llamado breve, gutural y muy grave, descrito como “oh-WOOOW” o, en ocasiones, “be-SERK”, mientras que la hembra emite vocalizaciones más agudas, representadas como “a-ta-HAAA” o “ta-HAAA”, con una terminación de carácter nasal.

    Durante la emisión de los llamados, los individuos suelen adoptar posturas corporales características. Sick (1997:242) menciona que, al vocalizar, levantan y sacuden la cabeza. Asimismo, durante el período de cortejo se registra una vocalización particular, descrita por de la Peña (2025:86) como un fuerte “Uahrrrraa… Uahrraaa”, emitido tanto en tierra como en vuelo.

    Entre las distintas onomatopeyas registradas para la especie figuran “graía-gragrá” y “chlarü” (Sick, 1997:242), además de las formas descritas por Belton (1984:477) y recopiladas por Brady (2020). En conjunto, estas vocalizaciones desempeñan un papel fundamental en la comunicación entre los miembros de la pareja y constituyen una de las características más reconocibles del comportamiento de la especie.


    ALIMENTACIÓN

    La alimentación del Chajá (Chauna torquata) es predominantemente herbívora y se basa principalmente en el consumo de vegetación mediante pastoreo, de manera similar a los patos y gansos (Carboneras, 1992:531; Weller, 1999:77, citado por Brady, 2020). Su dieta está compuesta fundamentalmente por hojas, tallos, semillas, plantas acuáticas, vegetación silvestre y algunos cultivos (Brady, 2020; Salvador et al., 2017:16). La excavación del sustrato para la obtención de alimento es muy poco frecuente (Carboneras, 1992:531), y existen registros de individuos cuya alimentación estuvo constituida exclusivamente por vegetación de marisma (Belton, 1984:479).

    Los análisis de contenidos estomacales realizados por Aravena (1928:155) evidenciaron un consumo casi exclusivo de material vegetal, especialmente hojas de especies del género Oxalis (O. corniculat var. purpurascens y O. martiana) y flores de “Mata negra/Yuyo moro” (Conyza bonariensis = Erigeron bonariense), sin hallarse restos de origen animal. De forma concordante, Fiora (1939) menciona el consumo de vegetales, mientras que Salvador et al. (2017:16) registraron hojas y tallos de plantas acuáticas, gramíneas y otras especies propias de ambientes asociados a lagunas y bañados.

    Aunque la dieta es esencialmente fitófaga, Zotta (1932:78) encontró en contenidos estomacales restos vegetales con semillas, piedritas y numerosos coleópteros, los cuales probablemente fueron ingeridos de manera accidental durante el pastoreo. En conjunto, la evidencia disponible indica que la especie se alimenta principalmente de vegetación característica de ambientes húmedos, siendo excepcional la presencia de componentes no vegetales en su dieta (Aravena, 1928:155; Zotta, 1932:78; Fiora, 1939; Salvador et al., 2017:16; Brady, 2020).

    En relación con el comportamiento alimentario, Belton (1984:479) observó que el 24 de octubre de 1983 cuatro individuos, tras nadar hasta la orilla de una pequeña isla en la marisma de Capivari, realizaron repetidos movimientos de estiramiento de las patas antes de dirigirse hacia terrenos más elevados, aportando información complementaria sobre las actividades asociadas al uso de ambientes de alimentación.

    REPRODUCCIÓN

    El Chajá establece vínculos de pareja duraderos que pueden mantenerse durante varios años e incluso durante toda la vida (Brady, 2020). Durante el cortejo se observan conductas de acicalamiento mutuo, vocalizaciones en dúo y una exhibición característica en la que los individuos retraen la cabeza hacia atrás hasta tocar la espalda (Stonor, 1939).

    La reproducción ocurre principalmente durante la primavera austral, con una mayor frecuencia de posturas entre octubre y noviembre, aunque se han registrado nidos y actividad reproductiva en distintos meses del año (Carboneras, 1992:534; Belton, 1984:478).

    La especie nidifica de manera solitaria y territorial (Carboneras, 1992:534; de la Peña, 2025:86). Los nidos se ubican en bañados, lagunas, esteros, represas y otros ambientes palustres, generalmente entre juncales, espadañales o pajonales inundados (Salvador et al., 2017:16; de la Peña, 2025:86). Habitualmente son construidos sobre el suelo, aunque ocasionalmente pueden situarse sobre arbustos (de la Peña, 2025:86). Ambos integrantes de la pareja participan en su construcción (Brady, 2020; Carboneras, 1992:532), elaborando una plataforma de juncos, espadañas, ramas y otra vegetación acuática recolectada principalmente en las inmediaciones, aunque en ocasiones el material puede ser transportado desde mayores distancias (Brady, 2020; Carboneras, 1992:532). Gibson (1880:166) describió el nido como una estructura poco profunda de juncos secos, situada sobre el agua o muy próxima a ella.

    La puesta consta generalmente de 3 a 5 huevos, aunque puede variar entre 2 y 7 (Carboneras, 1992:532; Brady, 2020). Los huevos son blancos o blanco-crema, ocasionalmente con manchas tenues, y presentan una cáscara granulada (Stonor, 1939; Gibson, 1880:166; Carboneras, 1992:532). En Córdoba se registraron nidadas de 3 a 5 huevos entre septiembre y enero (Salvador et al., 2017:16).

    La incubación es compartida por ambos sexos y se prolonga aproximadamente entre 42 y 46 días (Carboneras, 1992:532, 534; Stonor, 1939). Cuando el nido queda temporalmente desatendido, los adultos pueden cubrir los huevos con material vegetal (Carboneras, 1992:532). El cuidado parental posterior también es ejercido por ambos progenitores, quienes atienden a las crías tras la eclosión (Stonor, 1939).

    Los pichones nacen cubiertos por abundante plumón gris amarillento o marrón amarillento, más claro en la región ventral (Stonor, 1939; Carboneras, 1992:532, 534; Gibson, 1880:167). Son nidífugos y abandonan el nido poco después de nacer, permaneciendo siempre próximos a sus padres y siguiéndolos de manera constante (Carboneras, 1992:532; Gibson, 1880:167). Durante las primeras semanas utilizan frecuentemente el agua como refugio entre la vegetación debido a su limitada capacidad de desplazamiento terrestre, aunque son buenos nadadores desde edades tempranas (Carboneras, 1992:532; Stonor, 1939).

    Los juveniles empluman entre las 8 y 10 semanas de edad y alcanzan la independencia completa entre las 12 y 14 semanas (Stonor, 1939; Weller, 1967; Carboneras, 1992:532). Sin embargo, Gibson (1880:167) observó que los jóvenes pueden permanecer junto a sus padres aun después de adquirir un plumaje similar al de los adultos y antes de desarrollar plenamente la capacidad de vuelo. En concordancia con ello, Belton (1984:478) observó el 24 de enero de 1979 una pareja acompañada por un pichón de 15 a 20 cm de altura cubierto de plumón pardo amarillento, y capturó el 13 de mayo de 1973 un juvenil de tamaño casi adulto que todavía no podía volar.

    En Argentina los registros de nidificación abarcan al menos 11 provincias (Buenos Aires, Córdoba, Corrientes, Entre Ríos, Formosa, Jujuy, La Pampa, Mendoza, Salta, San Luis y Santa Fe), siendo Buenos Aires y Santa Fe las jurisdicciones con mayor cantidad de observaciones documentadas, existiendo registros reproductivos para todos los meses del año (de la Peña, 2025:86). Las posturas registradas oscilan generalmente entre 3 y 5 huevos, aunque existen nidadas de hasta 7 huevos (Weller, 1968; De la Peña, 2013:24).

    Registros de nidificación y crías de Chauna torquata en Argentina

    Provincia Localidad Registro Referencias
    Buenos Aires Buenos Aires (sin localidad precisa) Nido Stenberg (1869:278)
    Buenos Aires Provincia de Buenos Aires Posturas en junio y octubre Durnford (1876:162)
    Buenos Aires Cabo San Antonio, Partido de la Costa Nidos con huevos; posturas en marzo, mayo, junio y agosto Gibson (1880:166); Gibson (1920)
    Buenos Aires Estancia El Espartillar, General Paz Pollito; nido parasitado por Heteronetta atricapilla Holland (1890:427); Holland (1892:206)
    Buenos Aires Ajó (Los Yuglases/Los Ingleses) Nido; octubre de 1908 y febrero de 1909 Grant (1911:342)
    Buenos Aires Zelaya Nido Pereyra (1923:174)
    Buenos Aires Rosas, Estancia El Toro (Las Flores) Nidificación de septiembre a marzo Daguerre (1922:264)
    Buenos Aires Cacharí Nido con huevos (14-XI-1919) Smyth (1927:13)
    Buenos Aires Estancia Cari Lauquen, General Lavalle Nido Gavio (1944:495)
    Buenos Aires Zoológico de Buenos Aires Posturas en abril, junio, septiembre, octubre y diciembre Saporiti (1947:434)
    Buenos Aires Zoológico de Buenos Aires 3–6 huevos Haedo Rossi (1970)
    Buenos Aires Provincia de Buenos Aires Cuatro nidos observados el 01-X-1953 Zuberbühler (1971)
    Buenos Aires Cabo San Antonio, Partido de la Costa 18 nidos; 4–7 huevos Weller (1968)
    Buenos Aires Otamendi, Campana Tres nidos; huevos en febrero y pichones en mayo Babarskas et al. (2003:69)
    Buenos Aires Parque Plaza Montero, Las Flores Nido entre juncos Tajer et al. (2007:7)
    Buenos Aires General Lavalle Nido parasitado por Heteronetta atricapilla Lyon & Eadie (2013)
    Buenos Aires Benito Juárez Nido (27-IX-2014) Torres (2014)
    Buenos Aires Magdalena Cuatro nidos con huevos (1938–1941) Earnshow en Salvador (2016a)
    Buenos Aires General Madariaga Nido con 4 huevos (13-X-2017) Paulos (2017)
    Buenos Aires Sin localidad precisa Nido Pagano en Salvador (2016a)
    Córdoba Morteros, San Justo Nido con 3 huevos (02-I-1982) De la Peña (2013:24)
    Córdoba Laborde, Unión Tres nidos con 4–5 huevos Nores e Yzurieta Salvador (2016a)
    Córdoba Departamento San Martín Cinco nidos con 4–5 huevos Salvador y Salvador en De la Peña (2016a)
    Córdoba Sin localidad precisa Nido Salvador et al. (2017)
    Corrientes Mburucuyá Dos nidos con 1 y 4 huevos De la Peña (2013:24)
    Corrientes Esteros del Iberá Nido con 5 huevos (20-VII-2013) Villalba (2013)
    Corrientes Concepción del Yaguareté Corá Nido con 5 huevos (08-IX-2017) Oscar (2017)
    Entre Ríos Ceibas, Islas del Ibicuy Nido (18-IX-2011) Lamela (2011)
    Entre Ríos Gualeguaychú Nido (20-VI-2016) Velázquez (2016)
    Formosa Reserva/Estancia El Bagual, Laishi Nidos de mayo-julio y octubre-diciembre; 3–5 huevos; crías de mayo-agosto Di Giacomo (2005:230)
    Jujuy Sin localidad precisa Nido Contino en IML, citado por Salvador (2016a)
    La Pampa General Pico Nidifica Acevedo et al. (2023)
    Mendoza Sin localidad precisa Nidifica Lucero (2020a)
    Salta Paso del Toro, Rosario de Lerma Un huevo (30-VII-1943) Pierotti (IML)
    Salta Sin localidad precisa Nido Depino et al. en eBird (2015)
    San Luis San Felipe, Chacabuco Pareja nidificando en juncal Nellar Ramonella (1993)
    Santa Fe Aguará Grande, San Cristóbal Dos nidos con 3 y 5 huevos De la Peña (2013:24)
    Santa Fe Marcelino Escalada, San Justo Nido con 5 huevos De la Peña (2013:24)
    Santa Fe Llambi Campbell, La Capital Tres nidos con 4–5 huevos De la Peña (2013:24)
    Santa Fe Calchaquí, Vera Siete nidos; hasta 7 huevos; registros de pichones De la Peña (2013:24)
    Santa Fe Los Amores, General Obligado Cuatro nidos; 1–3 huevos; pareja con 5 pichones De la Peña (2013:24)
    Santa Fe Paraje 29 Nido en construcción De la Peña (2013:24)
    Santa Fe Elisa, Las Colonias Nido con 3 pichones (25-XI-2012) Merlino en De la Peña (2016a)
    Santa Fe Elisa, Las Colonias Ave incubando (15-IX-2017) Merlino (in litt. 2020)
    Santa Fe Rincón de Ávila, La Capital Nido con ave incubando De la Peña (inéd. 2017)
    Santa Fe Ruta 62, oeste de Cayastá, Garay Nido con adulto incubando (10-II-2020) De la Peña (inéd. 2020)


  • Chajá | Descripción


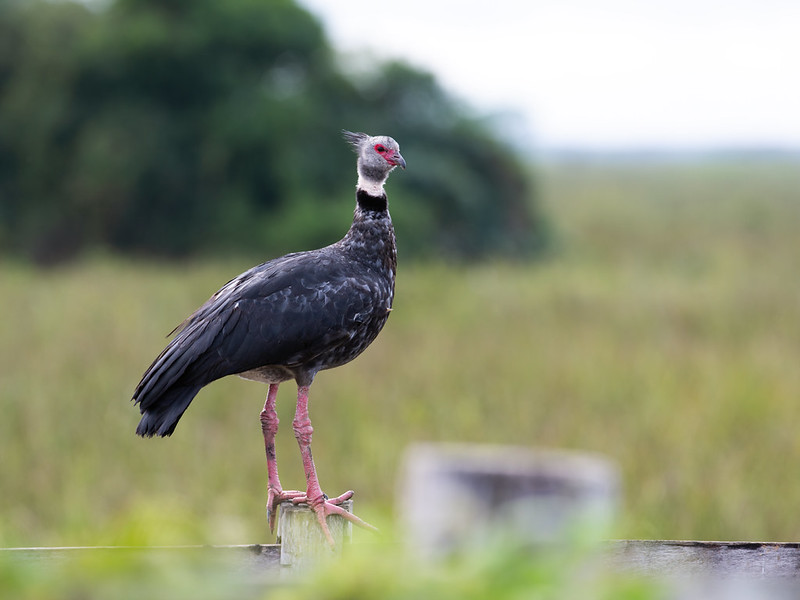
    © Nick Athanas. Chauna torquata. Santa Isobel, Mato Grosso, Brasil. Julio 2014. Algunos derechos reservados

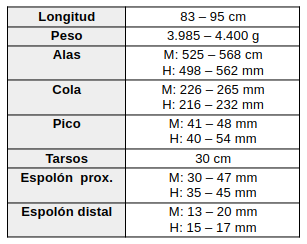
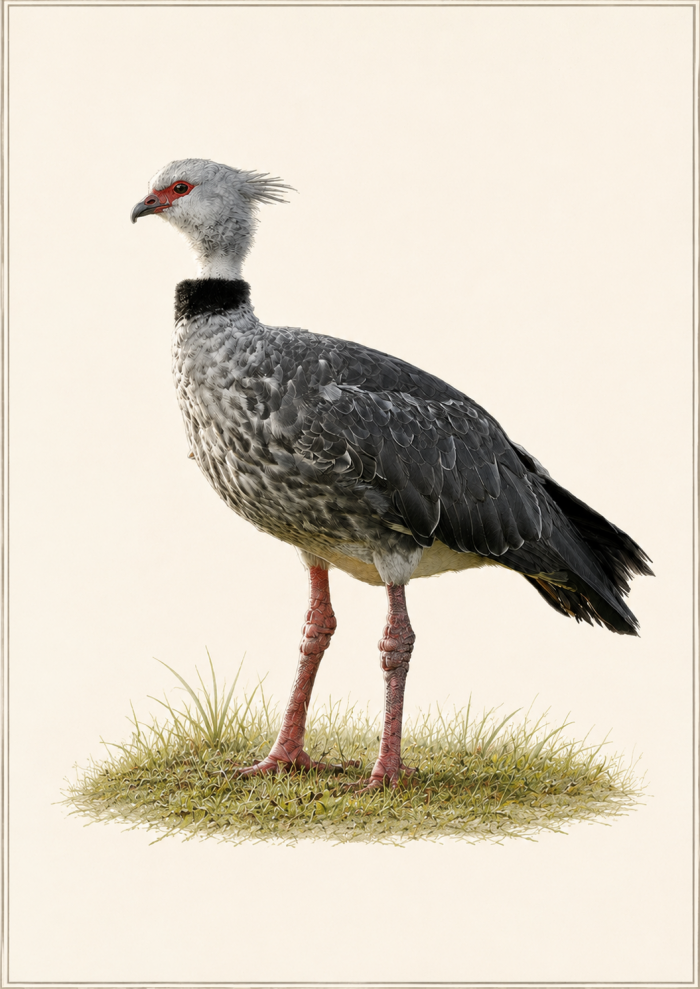
    Es un ave de gran tamaño, comparable a un pavo, con una longitud de 85–95 cm y un peso promedio de 3.985 g (de la Peña, 2025:86). Se caracteriza por presentar una cabeza grande con copete o cresta de color gris pizarra oscuro. El cuello es gris y está rodeado en su base por un collar negro, precedido por un anillo o banda blanquecina de plumón; algunos autores también mencionan la presencia de una región desnuda alrededor del cuello, no siempre visible (Sick, 1997:242; Castellanos, 1931:387; Lucero, 2020:26).
    El iris es pardo oscuro, mientras que la región periocular desnuda y el área implume de la cara son de color rojo con tonalidades rosadas. El pico es negro, corto y robusto, con una longitud aproximada de 4,5 cm, y el lorum se encuentra desnudo (Castellanos, 1931:387; Sick, 1997:242; Lucero, 2020:26).
    La coloración general del cuerpo es grisácea o marrón grisáceo oscuro. El dorso es gris oscuro o pizarra, con reflejos acerados, mientras que el pecho presenta tonalidades grises con las plumas bordeadas de blanco. El abdomen es gris claro a blanquecino (Castellanos, 1931:387; Sick, 1997:242; Lucero, 2020:26).
    Las alas poseen remeras primarias y secundarias de color pardo oscuro a negro, con cubiertas gris oscuro cuyos bordes son blanquecinos. La superficie superior de las alas es predominantemente negra, pero exhibe una extensa área blanca visible durante el vuelo. Ventralmente, las cubiertas alares y la base de las primarias son blancas, dando a la superficie inferior del ala una apariencia completamente blanca (Sick, 1997:242; Castellanos, 1931:387; Lucero, 2020:26).
    Un rasgo distintivo de la especie es la presencia de dos espolones metacarpianos en cada ala, de color rojizo o anaranjado; el espolón principal alcanza una longitud similar a la del pico, mientras que el segundo es considerablemente menor (Castellanos, 1931:387; Sick, 1997:242; Lucero, 2020:26).
    La cola es relativamente corta, de aproximadamente 20 cm de longitud, con timoneras de color pardo oscuro u oscuro uniforme (Castellanos, 1931:387; Sick, 1997:242). Las patas son robustas, rojas, rosadas o rojo anaranjadas, con aproximadamente un tercio de las tibias desnudas y uñas negras (Castellanos, 1931:387; Sick, 1997:242; Lucero, 2020:26).
    Plumaje juvenil
    Los pichones están cubiertos por un plumón suave, fino y denso, de color amarillo con un ligero tinte verdoso. La región ventral es más pálida, mientras que la dorsal presenta tonalidades parduscas. La cabeza es amarillo ocrácea y el pico plomizo. Presentan iris pardos y patas rojo anaranjadas (Lucero, 2020:26).

    (Rand, 1954:127; Blake, 1977:211; Belton, 1984:477; Carboneras, 1992:534; Brady, 2020; de la Peña, 2025:86)

  • Chajá | Taxonomía


    Monotípica (Carboneras, 1992:534; Brady, 2020; del Hoyo, 2020:69)
    El fósil más antiguo data del Pleistoceno y fue encontrado en Argentina; el fósil tiene aproximadamente 20.000 años de antigüedad (Carboneras 1992:528).
    Es muy similar a la Northern Screamer (Chauna chavaria), pero el cuello de la Chauna torquata es casi enteramente negro, y tiene la garganta y los lados de la cara blancos en contraste. Las dos especies no se solapan geográficamente.

  • Chajá (Chauna torquata)


    El Chajá (Chauna torquata) es el miembro más meridional de una de las familias más características de aves neotropicales, los Anhimidae. Endémica de Sudamérica. Aparece en humedales y pantanos subtropicales a tropicales y puede encontrarse en campos de cultivo.También es una de las aves más grandes que se encuentran en su área de distribución y es fácilmente identificable por su gran tamaño, su cabeza desproporcionadamente pequeña y su plumaje predominantemente gris. Otro rasgo distintivo son los dos espolones óseos de las alas (Brady, 2020)

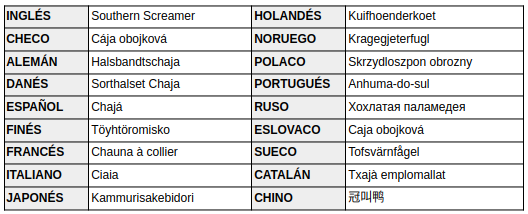
    Nombres comunes: Chajá (Argentina); Tachá, Anhupoca, Chaá, Chagá, Chajá, Inhaúma, Saúna, Tachã, tachã-do-sul, tahã (Brasil); Chajá común, Tapacaré (Bolivia); Chaha (Paraguay); También llamado Chahá, Tacat, Tría, Trojoqui, Yajá; En Guaraní: «Chahâ»  (Sick, 1997:242; de la Peña, 2025:86; Chébez, 1996:120).

    En otros idiomas:

    Breves Apuntes Históricos

  • Familia Anhimidae

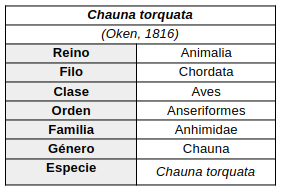
    La familia Anhimidae comprende aves acuáticas sudamericanas pertenecientes al orden Anseriformes, caracterizadas por una combinación singular de rasgos morfológicos, entre ellos una cabeza relativamente pequeña, cuerpo robusto, espuelas en las alas utilizadas en disputas territoriales y reproductivas, dedos largos escasamente palmeados, sacos dérmicos llenos de aire y la ausencia de procesos uncinados en las costillas. Estas adaptaciones, junto con sus amplias alas aptas para el planeo y sus vocalizaciones roncas y graves, las distinguen de otras aves acuáticas.

    Las evidencias moleculares y morfológicas sitúan a los Anhimidae dentro de los Anseriformes (Livezey & Zusi, 2001). Sin embargo, persiste incertidumbre acerca de sus relaciones filogenéticas exactas, ya que podrían constituir el grupo hermano de las demás familias del orden o estar más estrechamente emparentados con Anseranatidae (Donne-Goussé et al., 2002; Eo et al., 2009; Ericson et al., 2006a; Hackett et al., 2008).

    Los Anhimidae ocupan diversos humedales tropicales y subtropicales de tierras bajas, incluyendo marismas, sabanas inundables, corredores ribereños y cuerpos de agua extensos. Presentan una dieta predominantemente herbívora basada en hojas, flores, semillas y otras plantas acuáticas, aunque ocasionalmente remueven el barro en busca de alimento.

    Su estrategia reproductiva se caracteriza por la monogamia, el cuidado biparental y la aparente formación de vínculos de pareja permanentes. Construyen grandes nidos de vegetación cerca o sobre el agua, donde las hembras depositan entre dos y siete huevos. Ambos progenitores participan en la construcción del nido, la incubación (42–45 días) y la crianza de los polluelos, que alcanzan la independencia entre las 12 y 14 semanas después de la eclosión.

    En términos de conservación, solo una de las tres especies reconocidas presenta preocupación inmediata: Chauna chavaria (NT), cuya reducida población, restringida al norte de Colombia y noroeste de Venezuela, muestra una tendencia decreciente.

    En Misiones Argentina: (1 Género, 1 especie)
    * Género Chauna (2 especies: 1 en Misiones)
    – Chauna torquata (Chajá)

  • Familia Anatidae

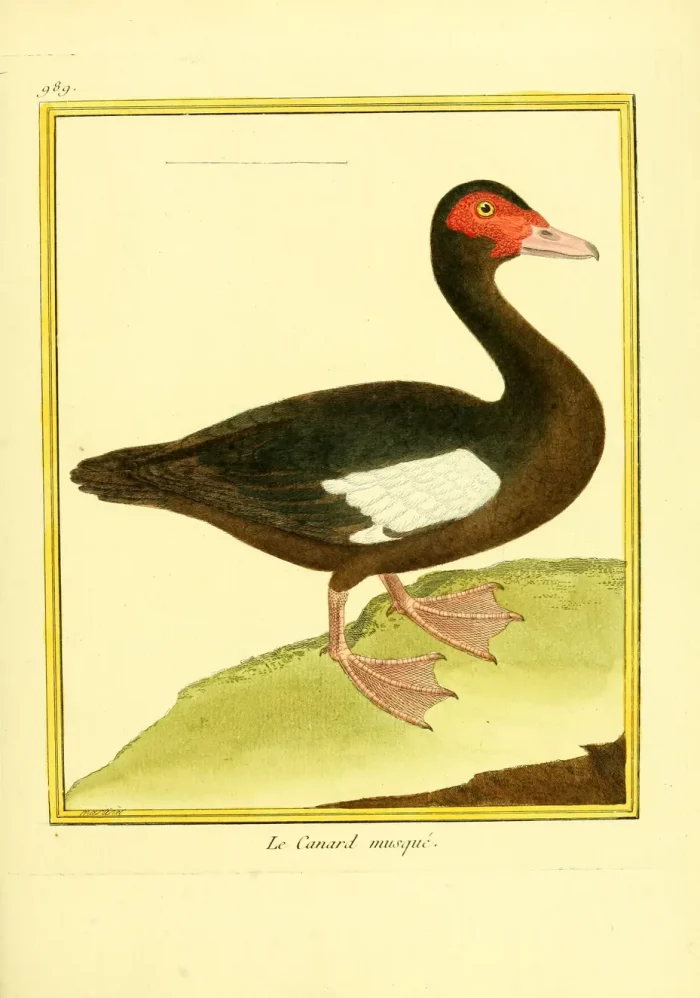
    Planches enluminées d’histoire naturelle. Martinet, F. N., Daubenton, M., Daubenton, E. L., Buffon, G. L. L. (1765-1783?) Vol X. Lámina 989. (Le canard musqué -Cairina moschata)

    La familia Anatidae pertenece al orden Anseriformes, integrado por tres familias: Anhimidae, Anatidae y Anseranatidae (del Hoyo, 2020:69). El primer fósil atribuible a esta familia proviene del Eoceno superior, quizás de hace 40-50 millones de años. (del Hoyo, 1992:532)
    Son aves acuáticas de tamaño mediano a grande, con una longitud corporal que puede variar entre 30 y 180 cm. Presentan un cuerpo robusto y compacto, patas cortas, cuello relativamente largo y cabeza generalmente pequeña. La longitud del cuello es particularmente notable en cisnes y gansos, aunque también se encuentra desarrollada en algunas especies de patos. Esta conformación corporal favorece la flotabilidad y la adaptación a la vida acuática, aunque puede dificultar el desplazamiento terrestre. No obstante, los anátidos presentan una mayor eficiencia locomotora en tierra que muchas aves marinas.
    Las alas son relativamente cortas, puntiagudas y de gran potencia. Debido a su elevado peso corporal y a una superficie alar relativamente reducida, estas aves presentan una alta carga alar, por lo que requieren un batido de alas rápido y continuo para generar y mantener la sustentación durante el vuelo. En consecuencia, los músculos pectorales se encuentran particularmente desarrollados y profundamente insertados en un esternón fuertemente aquillado, lo que contribuye a la característica apariencia de pecho ancho de estos animales.
    En la mayoría de las especies, la cola es relativamente corta y presenta una forma cuadrada o ligeramente redondeada. Esta característica, junto con la conformación compacta del cuerpo, contribuye a su adaptación a los ambientes acuáticos.
    Los patos, gansos y cisnes poseen un denso plumaje que proporciona aislamiento térmico y resulta fundamental para mantener la temperatura corporal, especialmente debido al contacto frecuente con el agua. Asimismo, el plumaje cumple una función esencial en la impermeabilización del cuerpo, por lo que debe mantenerse en condiciones óptimas. Por este motivo, estas aves dedican una considerable cantidad de tiempo al cuidado y acicalamiento de sus plumas. La glándula uropigial, localizada en la región dorsal de la base de la cola y cubierta por plumas, se encuentra particularmente desarrollada en esta familia y produce las secreciones utilizadas durante el acicalamiento.
    Las características morfológicas de los anátidos condicionan de manera importante su desempeño durante el vuelo. Debido a su cuerpo pesado y compacto, combinado con una superficie alar relativamente pequeña, necesitan mantener una elevada frecuencia de aleteo. El despegue constituye una de las fases que demanda mayor esfuerzo y, en numerosas especies, requiere una carrera previa sobre la superficie del agua. Durante esta maniobra, el ave incrementa progresivamente la velocidad mediante el batido de las alas y el apoyo de las patas sobre el agua hasta alcanzar la sustentación necesaria para elevarse.
    La capacidad de despegue varía considerablemente entre las especies. Algunas presentan importantes dificultades para iniciar el vuelo; un ejemplo es el quetro volador (*Tachyeres patachonicus*), cuyos individuos particularmente pesados pueden incluso presentar una capacidad de vuelo reducida o ser incapaces de volar. En contraste, las especies de hábitos más terrestres, como determinados gansos, el tarro blanco (*Tadorna tadorna*) y algunos patos buceadores, pueden iniciar el vuelo sin necesidad de realizar una carrera prolongada sobre el agua e incluso despegar directamente desde tierra.
    Una vez en vuelo, los anátidos mantienen generalmente una frecuencia de aleteo elevada, por lo que tienen una capacidad limitada para realizar planeos prolongados. El planeo suele producirse principalmente durante las fases de aproximación y aterrizaje. Sin embargo, algunas especies migratorias pueden recorrer grandes distancias y alcanzar altitudes considerables. Se han registrado gansos y cisnes a más de 8.000 m s. n. m., donde pueden aprovechar corrientes de viento de gran intensidad asociadas con la corriente en chorro de la baja estratosfera, reduciendo así el gasto energético durante sus desplazamientos.
    Otra adaptación relevante para el vuelo de larga distancia es la formación en V que adoptan numerosas especies durante sus desplazamientos migratorios. Esta disposición permite reducir la resistencia aerodinámica que experimentan los individuos que vuelan detrás, debido a las corrientes de aire generadas por las aves que los preceden. De este modo, la formación contribuye a disminuir el esfuerzo energético individual y favorece la eficiencia del vuelo colectivo (del Hoyo, 1992:532).
    Su distribución es cosmopolita, con presencia en todas las regiones del mundo, excepto la Antártida, y ocupan una amplia diversidad de hábitats acuáticos, aunque la mayoría de las especies se reproduce principalmente en ambientes de agua dulce (del Hoyo, 1992:532; del Hoyo, 2020:69).
    La división taxonómica de la familia Anatidae es bastante compleja y ha sido objeto de numerosas disputas y revisiones. La mayor parte de la controversia se centra en la división en subfamilias y tribus, mientras que existe mucho más consenso sobre el número total de especies y el estatus taxonómico de las diferentes formas (del Hoyo, 1992:532). Winkler et al. (2020) reconocen para la familia Anatidae un total de 53 géneros y 174 especies, mientras que del Hoyo (2020:69) registra 52 géneros y 168 especies.
    La mayoría de los anátidos presenta hábitos alimentarios predominantemente herbívoros; sin embargo, durante la temporada reproductiva, algunas especies, como los patos zambullidores, incorporan insectos y otros invertebrados acuáticos a su dieta (Winkler et al., 2020).
    La reproducción de los anátidos presenta diversas estrategias, aunque la mayoría de las especies son monógamas. En gansos y cisnes, los vínculos de pareja pueden mantenerse durante toda la vida. Las agrupaciones reproductivas también son variables, desde parejas con un marcado comportamiento territorial hasta concentraciones densas o coloniales de individuos reproductores. La mayoría de las especies construye sus nidos en el suelo, generalmente cerca del borde del agua, y los recubre con plumón, particularmente en las regiones de latitudes altas. No obstante, algunas especies utilizan cavidades o madrigueras en árboles, mientras que otras ocupan nidos arbóreos construidos con ramas por otras especies (Winkler et al., 2020).
    Las puestas comprenden generalmente entre 4 y 13 huevos relativamente grandes, cuya incubación se prolonga entre 21 y 40 días. En la mayoría de los patos, la incubación de los huevos y el cuidado de los pichones corresponden exclusivamente a la hembra. En los anátidos de mayor tamaño y con comportamiento altamente territorial, los machos pueden permanecer sobre los huevos durante la ausencia de las hembras, aunque no presentan una placa incubatriz funcional. Los pichones son altamente precociales y, poco después de la eclosión, abandonan el nido y establecen un proceso de impronta con el ser animado más cercano, generalmente la madre. Esta permanece a su cuidado hasta que alcanzan la independencia, proceso que puede extenderse durante varias semanas o meses (Winkler et al., 2020).
    A pesar de que algunas especies se encuentran entre las aves más numerosas del mundo, diversas poblaciones presentan tendencias decrecientes. Winkler et al. (2020) señalan que «las poblaciones de 40 especies, equivalentes al 24 %, están disminuyendo como consecuencia principalmente de la destrucción del hábitat y la caza. En las especies endémicas de islas, otro factor de especial relevancia corresponde a la introducción de mamíferos depredadores no autóctonos. Dentro de las especies afectadas se encuentran nueve clasificadas como Casi Amenazadas (NT), catorce como Vulnerables (VU), once como En Peligro (EN) y seis como En Peligro Crítico (CR)».

    En Argentina en la provincia de Misiones, la familia Anatidae está representada por 13 géneros y 16 especies (del Hoyo, 2020:69).

    • Género Dendrocigna (8 especies)
    • Género Cairina (1 especie)
      • Cairina moschata (Pato real)
    • Género Cignus (6 especies)
      •  Cignus melancoryphus (Cisne cuello negro)
    • Género Anas (31 especies)
      • Anas georgica (Pato maicero)
      • Anas flavirostris (Pato barcino)
    • Género Nomonyx (1 especie)
      • Nomonyx dominicus (Pato fierro)
    • Género Oxyura (6 especies)
      • Oxyura vittata (Pato zambullidor chico)
    • Género Coscoroba (1 especie)
      • Coscoroba coscoroba (Coscoroba)
    • Género Sarkidiornis (2 especies)
      • Sarkidiornis sylvicola (Pato crestudo)
    • Género Netta (3 especies)
      • Netta peposaca (Pato picazo)
    • Género Amazonetta (1 especie)
      • Amazonetta brasiliensis (Pato cutirí)
    • Género Spatula (10 especies)
      • Spatula versicolor (Pato capuchino)
      • Spatula cyanoptera (Pato colorado)
    • Género Mareca (5 especies)
      • Mareca Sibilatrix (Pato overo)
    • Género Mergus (4 especies)
      • Mergus octosetaceus (Pato serrucho)

    BIBLIOGRAFÍA
    * del Hoyo (1992;532) Handbook of the Birds of the World
    * Winkler, D. W., S. M. Billerman, and I. J. Lovette (2020). Ducks, Geese, and Waterfowl (Anatidae), version 1.0. In Birds of the World (S. M. Billerman, B. K. Keeney, P. G. Rodewald, and T. S. Schulenberg, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.anatid1.01

  • Yacutinga | Bibliografía


    1. Barnett, J. M. & M. Pearman (2001). Lista comentada de las aves argentinas. Lynx Edicions, Barcelona. 164 pp. ISBN 84-87334-32-6
    2. Benstead, P. J., C. J. S. Jeffs & R. D. Hearn (1998). Riparian bird densities along four tributaries of the río Paraná in north-east Argentina. Hornero 15: 68-71. (enlace)
    3. Bernardo, C. S. S., Rubim, P., Bueno, R. S., Begotti, R. A., Meirelles, F., Donatti, C. I., Denzin, C., Steffler, C. E., Marques, R. M., Bovendorp, R. S., Gobbo, S. K. & M. Galetti (2011). Density estimates of the Black-fronted Piping Guan in the Brazilian Atlantic Rainforest. Wilson J. Orn., 123 (4): 690–698. (enlace)
    4. BirdLife International (2018). Species factsheet: Black-fronted Piping-guan Pipile jacutinga. Downloaded from https://datazone.birdlife.org/species/factsheet/black-fronted-piping-guan-pipile-jacutinga 12/05/20261.
    5. Bodrati, A. & K. Cockle (2006). Habitat, distribution and conservation of Atlantic forest birds in Argentina: notes on nine rare or threatened species. Ornitología Neotropical, 17 (2): 243–258. (enlace)
    6. Bodrati, A. & K. Cockle (2007). Parque Provincial Cruce Caballero. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 313-315. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires (enlace)
    7. Bodrati, A. & K. Cockle (2007a). San Antonio. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad:287-288. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    8. Bodrati, A. & K. Cockle (2007b). Alta cuenca del arroyo Alegría. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 290-292. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    9. Bodrati, A., Areta, J. I., Codesido, M. & N. Rey (2007). Parque Provincial Uruzú y Reserva Forestal San Jorge. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 282-284. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    10. Bodrati, A., Cockle, K., Matuchaka, V. & C. Maders (2007). Reserva de la Biósfera Yabotí. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 300-302. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    11. Bodrati, A., K. Cockle, J. M. Segovia, I. Roesler, J. I. Areta & E. Jordan (2010). La avifauna del Parque Provincial Cruce Caballero, Provincia de Misiones, Argentina. Cotinga, 32: 41–64. (enlace)
    12. Chébez, J. C. (1996). Fauna misionera, catálogo sistemático y zoogeográfico de los vertebrados de la provincia de Misiones (Argentina). Monografía No 5. Págs. 320. L. O. L. A. Bs.Aires. 320 pp. ISBN 950-9725-20-X
    13. Chébez, J. C. (2007a). Sierra Morena. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 288-289. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    14. Chébez, J. C. (2007b). Cuenca del Piray Mini. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 289-290. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    15. Chébez, J. C. (2007c). Alta cuenca del arroyo Piray Guazú. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 292-293. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    16. Chébez, J. C. (2007d). Parque Provincial Salta Encantado del Valle del Cuñá-Pirú. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 303-304. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires (enlace)
    17. Chébez, J. C. (2007e). Parque Provincial Piñalito y alrededores. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 298-299. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    18. Chébez, J. C. (2008). Los que se van. Editorial Albatros, Buenos Aires.
    19. Cockle, K. & A. Bodrati (2011). Situación de la yacutinga (Aburria jacutinga) en Argentina. Bull. Cracid Specialist Group, 31: 12–21. (enlace)
    20. de la Peña, M. R. (2015). Aves Argentinas. Incluye nidos y huevos. 1º Ed. Santa Fe: Ediciones UNL; CABA: EUDEBA; Vol 1; 496 pp. ISBN 978-987-657-986-5
    21. de la Peña, M. R. (2025). Aves Argentinas. Descripción, Comportamiento, Reproducción y Distribución (Actualización). Tomo 1: Rheidae, Tinamidae, Anhimidae, Anatidae, Cracidae, Odontophoridae, Phasianidae. Comunicaciones del Museo Provincial de Ciencias Naturales “Florentino Ameghino”. (Nueva Serie). Pág. 1-298. ISSN 0325-3856 (enlace)
    22. del Hoyo, J. & A. Motis (2004). Update chapter. In Curassows and Related Birds. 2nd edition (J. Delacour, and D. Amadon). Lynx Edicions, Barcelona, Spain, and American Museum of Natural History, New York, NY, USA. pp. 322–476. (enlace)
    23. del Hoyo, J. ed. (2020). All the Birds of the World. Lynx Edicions. Barcelona, España. 967 pp. ISBN 978-84-16728-37-4
    24. del Hoyo, J., G. M. Kirwan & C. J. Sharpe (2020). Black-fronted Piping-Guan (Pipile jacutinga), version 1.0. In Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie, and E. de Juana, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.bfpgua1.01
    25. Di Giacomo, A. S., M. V. De Francesco & E. G. Coconier (editores). (2007). Áreas importantes para la conservación de las aves en Argentina. Sitios Prioritarios para la conservacion de la biodiversidad. Temas de Naturaleza y Conservación 5:1-514. CD- ROM. Edición Revisada y Corregida 1. Aves Argentinas/ Asociación ornitológica del Plata, Buenos Aires. (enlace)
    26. eBird ( 2026). Ficha: Pava Yacutinga (Pipile jacutinga); recuperado en mayo 2026 de https://ebird.org/species/bfpgua1/AR
    27. EcoRegistros (2026). Ficha: Yacutinga (Pipile jacutinga, Spix, 1825); recuperado en mayo 2026 de ecoregistros.org/ficha/Pipile-jacutinga
    28. Esquivel, A., M. C. Velázquez, A. Bodrati, R. M. Fraga, H. del Castillo, J. Klavins, R. P. Clay, A. Madroño, & S. J. Peris (2007). Status of the avifauna of San Rafael National Park, one of the last large fragments of Atlantic forest in Paraguay. Bird Conservation International, 17 (4): 301–317. (enlace)
    29. Fariña R. (editor), (2021). Plan para la Conservación de la Yacutinga en la Argentina. Resultados del taller de diagnóstico y consensos de trabajo. Aves Argentinas/Asociación Ornitológica del Plata y Ministerio de Ambiente y Recursos Naturales de la Provincia de Misiones. Pto. Iguazú, Misiones. Argentina. (enlace)
    30. Galetti, M., Martuscelli, P., Olmos, F. & A. Aleixo (1997). Ecology and conservation of the jacutinga Pipile jacutinga in the Atlantic Forest of Brazil. Biological Conservation, 82: 31–39. (enlace)
    31. Gil, G. & D. Ciarmiello (2007). Parque Nacional Iguazú y alrededores. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 278-280. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires (enlace)
    32. Gil, G. (2022). Propuesta de Áreas Claves para la Biodiversidad (Key Biodiversity Areas – KBA) en la Provincia de Misiones – República Argentina. Aves Argentinas. Buenos Aires, Argentina. 174 pp. (enlace)
    33. Giraudo, A. R., J. L. Baldo & R. R. Abramson (1993). Aves observadas en el sudeste, centro y este de Misiones (República Argentina), con la mención de especies nuevas o poco conocidas para la provincia. Nótulas Faunísticas, 49: 1-13. (enlace)
    34. Guix, J. C. (1997). Exclusão geográfica e ecológica de Penelope obscura, Penelope superciliaris e Pipile jacutinga (Galliformes, Cracidae) no estado de São Paulo. Ararajuba, 5 (2):195–202. (enlace)
    35. Lepage, D. (2003). Avibase-La base de datos World Bird. Ficha: Pava yacutinga (Pipile jacutinga, Spix, 1825); recuperado en mayo 2026 de https://avibase.bsc-eoc.org/species.jsp?avibaseid=DA1A931A65A1EB22
    36. Narosky, T. & D. Yzurieta (2010). Birds of Argentina and Uruguay: a field guide. Vázquez Mazzini Editores, Buenos Aires, Argentina. ISBN 950-99063-6-0
    37. Ordano, M. & A. Bosisio (1997). Historial records of threatened and near threatened argentinian birds from Museo Provincial de Ciencias Naturales Florentino Ameghino of Santa Fe, Argentina. Bull. Br. Ornithol. Club, 117: 77-79 (enlace)
    38. Pimentel, L. & F. Olmos (2011). The birds of Reserva Ecológica Guapiaçu (REGUA), Rio de Janeiro, Brazil. Cotinga, 33: 6–22. (enlace)
    39. Planqué, R., Vellinga, W. P., Pieterse, S., Jongsma J. & R. de By (Xeno-canto Foundation). Ficha: Black-fronted Piping Guan · Pipile jacutinga · (Spix, 1825); recuperado en mayo 2026 de https://xeno-canto.org/species/pipile-jacutinga
    40. Rey, N. (2007). Corredor Urugua-í-Foerster. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 284-286. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires (enlace)
    41. Rey, N. (2007). Parque Provincial Urugua-í. En Di Giacomo, A. S., M. V. De Francesco y E. G. Coconier (editores). 2007. Áreas importantes para la conservación de las aves en Argentina. Sitios prioritarios para la conservación de la biodiversidad: 280-281. Temas de Naturaleza y Conservación 5. CD-ROM. Edición Revisada y Corregida. Aves Argentinas/Asociación Ornitológica del Plata, Buenos Aires (enlace)
    42. Saibene, C. A., Castelino, M. A., Rey, N. R., Herrera, J. & J. Calo (1996). Inventario de las Aves del Parque Nacional “Iguazú”, Misiones, Argentina. Monografía, 9. Ed. L.O.L.A. Literature of Latin America, Buenos Aires. 68 pp. ISSN 0328-1620
    43. Sick, H. (1993). Birds in Brazil. A Natural History. Princeton University Press, Princeton, NJ, USA. ISBN 0-691-08569-2
    44. Sick, H. (1997). Ornitologia Brasileira. Editora Nova Fronteira, Rio de Janeiro, Brazil. 912 pp. ISBN 85-209-0816-0
    45. Sistema de Información de Biodiversidad (SIB). Administración Parques Nacionales; recuperado en mayo 2026 de https://sib.gob.ar/especies/pipile-jacutinga
    46. Vaurie, C. (1967). Systematic Notes on the Bird Family Cracidae. N.º 7. The genus Pipile. American Museum Novitates, 2296: 1-16 (enlace)
  • Yacutinga | Conservación


    ESTADO DE CONSERVACIÓN: EN PELIGRO DE EXTINCIÓN

    La Yacutinga (Pipile jacutinga) está categorizada como «En Peligro de Extinción» debido a la rápida y continua disminución de sus poblaciones y de su hábitat (BirdLife International, 2026). Aunque anteriormente fue una especie común e incluso abundante, la pérdida masiva de bosques y la intensa presión de caza han provocado su desaparición en gran parte de su distribución original. Actualmente es rara fuera de algunas áreas protegidas y sus poblaciones permanecen fragmentadas.

    Las poblaciones han disminuido drásticamente en Brasil, Paraguay y Argentina, llegando prácticamente a extinguirse en los extremos norte y sur de su área de distribución (Galetti et al., 1997; Guix, 1997; BirdLife International, 2018). Las poblaciones remanentes más importantes se concentran en Misiones (Argentina), São Paulo y Paraná (Brasil), con algunos núcleos en Santa Catarina (do Rosário, 1996). Desde el año 2000, la especie fue registrada en 18 localidades argentinas y presenta dos bastiones principales: el complejo Iguazú–Urugua-í, particularmente el Establecimiento San Jorge, y la Reserva de Biosfera Yabotí, especialmente el Parque Provincial Esmeralda (Cockle y Bodrati, 2011). Sin embargo, desapareció del sur de Misiones y de la mayoría de los sitios sin vigilancia permanente de guardaparques (Bodrati y Cockle, 2006; Cockle y Bodrati, 2011). Asimismo, actualmente se considera extinta en la provincia argentina de Corrientes, donde anteriormente existían registros para las selvas del norte (Short, 1971).

    A escala global, la población se estimó entre 1.500 y 7.000 individuos maduros (BirdLife International, 2018), con una tendencia poblacional fuertemente decreciente (BirdLife International, 2026). En Paraguay, la situación también es crítica: la población total se estimó entre 870 y 1.515 individuos, concentrándose aproximadamente 600 ejemplares en la Reserva Natural del Bosque Mbaracayú. La especie ha desaparecido de gran parte del país y no fue detectada durante extensos estudios realizados en el Parque Nacional San Rafael entre 2000 y 2006 (Esquivel et al., 2007), mientras que pobladores locales indicaron una marcada disminución reciente (López et al., 2007).

    Según (del Hoyo, Kirwan y Sharpe, 2020), la especie figura además en el Apéndice I de CITES y sus poblaciones protegidas son insuficientes, estimándose menos de 10.000 individuos a nivel global. Históricamente, la especie sufrió eventos extremos: aproximadamente 50.000 aves murieron durante el invierno de 1866 en Santa Catarina. Desde las décadas de 1940 y 1950 se observa una disminución sostenida y una fragmentación severa de sus poblaciones.

    Las principales amenazas son la caza furtiva y la pérdida de hábitat (Bernardo et al., 2011; Cockle y Bodrati, 2011). Su comportamiento confiado y su valor como ave de caza la convierten en un blanco fácil. En Misiones y el este de Paraguay su carne es particularmente apreciada. La escasez de guardaparques y la caza ilegal afectan incluso áreas protegidas (Bodrati y Cockle, 2006; Bodrati et al., 2005). Paralelamente, la deforestación, la expansión agrícola, los desarrollos hidroeléctricos y la explotación de recursos forestales han reducido y degradado su hábitat (Galetti et al., 1997a; Bernardo et al., 2011). En Argentina, incluso uno de sus principales recursos alimenticios, el palmito, fue intensamente sobreexplotado (del Hoyo, Kirwan y Sharpe, 2020).

    Debido a este rápido declive, la especie fue reclasificada de Vulnerable a En Peligro en 2004 (BirdLife International, 2014). Actualmente la especie está catalogada como “En Peligro” tanto internacionalmente como a nivel nacional en los tres países donde se distribuye (BirdLife International, 2018; Guyra Paraguay, 2005; MAyDS y AA, 2017; Fariña, 2021:2).

    Estado de conservación en Argentina (SIB 2026)

    En Peligro (EN): según AA y SAyDS, 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable) .López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina. 1 ed. AOP: Buenos Aires, Argentina
    En Peligro (EP): según Libro Rojo, 1997 (Fundación para la Conservación de las Especies y el Medio Ambiente). Libro Rojo de Mamíferos y Aves Amenazados de Argentina. García Fernández, J.J.; Ojeda, R.A.; Fraga, R.M.; Díaz, G-B. y R. Baigún. Ed. Dupont. 1997. 221pp. Primera Edición
    En Peligro (EN): según MADS y AA, 2017 (Ministerio de Ambiente y Desarrollo Sustentable de la Nación y Aves Argentinas). Categorización de las Aves de la Argentina según su estado de conservación. Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas. 146 p. 2017
    En Peligro de Extinción (PE): según SAyDS, 2010 (Secretaría de Ambiente y Desarrollo Sustentable). Categorización de aves autóctonas de Argentina. Lista de aves no registradas, endémicas y exóticas de Argentina (Res 348). 2010
    En Peligro (EN): según UICN, 2004 (Unión Internacional para la Conservación de la Naturaleza). Lista Roja de la UICN. 2004
    En Peligro (EN): según UICN (API) (Unión Internacional para la Conservación de la Naturaleza). Lista Roja de la UICN publicada en https://www.iucnredlist.org. Actualización en tiempo real