ESTADO DE CONSERVACIÓN SEGÚN BIRDLIFE INTERNACIONAL: PREOCUPACIÓN MENOR.
Esta especie tiene un rango de distribución extremadamente grande y por lo tanto no se aproxima a los umbrales de vulnerabilidad bajo criterio de tamaño de la extensión de la población (Extensión < 20.000 km² combinado con una declinación o fluctuación del tamaño de la extensión, extensión/calidad del hábitat, o tamaño de la población y un pequeño número de localizaciones o con fragmentación grave). A pesar que la población muestra tendencia a estar disminuyendo, se cree que esta disminución no es lo suficientemente rápida para alcanzar los umbrales de Vulnerabilidad bajo el criterio de tendencia poblacional (disminución > 30% en diez años o en tres generaciones). El tamaño de la población es extremadamente grande, y por lo tanto no alcanza los umbrales de Vulnerabilidad bajo el criterio de tamaño de la población (<10.000 individuos maduros con una disminución continua estimada > del 10% en diez años o en tres generaciones o con una estructura de población específica). Por estas razones, la especie es evaluada como “común” y de “preocupación menor” (Stotz et al., 1996:196); (del Hoyo, 2020:120).
La población global se calcula en unos 23.000.000 de individuos maduros (Partners in Flight 2019); está sufriendo una disminución significativa de aproximadamente 1.8% por año (entre 1970 y 2017), y las tendencias a corto plazo sugieren que la población en América del Norte ha disminuido un 15% en las últimas 3 generaciones (Pardieck et al., 2018); (Butcher & Niven, 2007).
Esta disminución sustancial en el número de esta especie, tal vez se deba a un aumento de la depredación, al uso indiscriminado de pesticidas que disminuyen el número de insectos , o a la pérdida del hábitat (Wedgwood, 1991:215); (Latta & Latta, 2015:528); (Szaro & Balda, 1986:253); (Pidgeon et al., 2001:1785); (Stevenson & Anderson, 1994:374).
ARGENTINA:
No Amenazada (NA): según AA y SAyDS, 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable ). López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina. 1º ed. AOP: Buenos Aires, Argentina No Amenazada (NA): según MADS y AA, 2017 (Ministerio de Ambiente y Desarrollo Sustentable de la Nación y Aves Argentinas ). Categorización de las Aves de la Argentina según su estado de conservación. Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas. 146 p. 2017 No Amenazada (NA): según SAyDS, 2010 (Secretaría de Ambiente y Desarrollo Sustentable ).Categorización de aves autóctonas de Argentina. Lista de aves no registradas, endémicas y exóticas de Argentina (Res 348). 2010 Preocupación Menor (LC): según UICN (API) (Unión Internacional para la Conservación de la Naturaleza ). Lista Roja de la UICN publicada en https://www.iucnredlist.org. Actualización en tiempo real
InfoNatura: Animals and Ecosystems of Latin America 2007
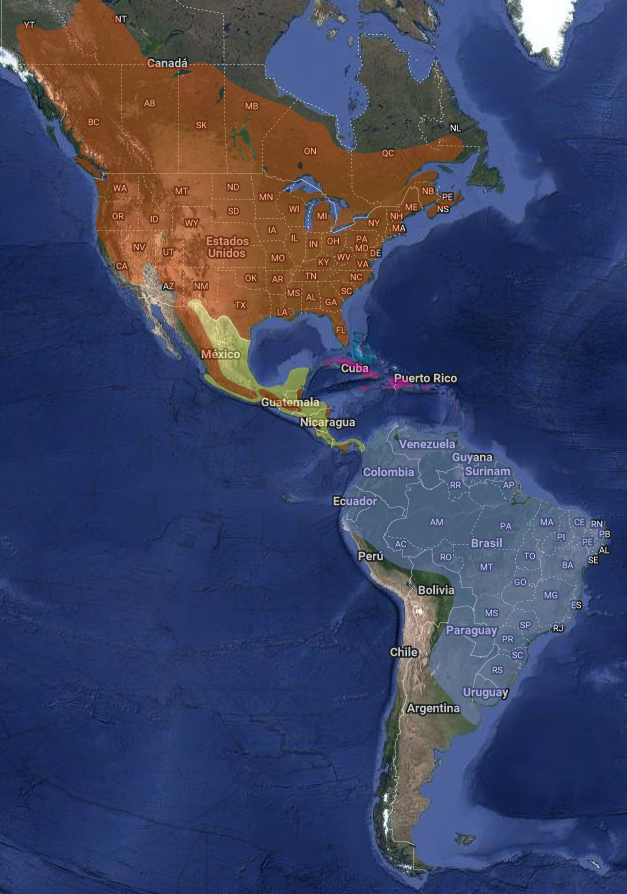
Nidifica en centro y sur de Canadá y noreste de EEUU. En invierno boreal migran en bandadas a través de América Central aunque pueden utilizar rutas trans-oceánicas a América del Sur (Norte y Centro de Argentina).
En América: Argentina; Belice (Lee Jones & Vallely, 2000:26); Bolivia; Brasil; Canadá; Colombia; Costa Rica; Cuba; República Dominicana; Ecuador; Guatemala; Belice, Haití; El Salvador; Honduras; Jamaica; México; Nicaragua; Panamá (Ridgely & Gwynne, 1989:193); Paraguay; Perú; Puerto Rico; EEUU; Uruguay (Cuello, 1975:16) y Venezuela. En las islas de Anguilla; Antigua y Barbuda; Aruba; Bahamas; Barbados; Bermuda; Bonaire, San Eustaquio y Saba; Caimán; Dominica; Guadalupe; Martinica; Montserrat; Saint Kitts y Nevis; Santa Lucía; San Martín; Saint Pierre y Miquelon; Saint Vincent; Virgin Islands (Stotz et al., 1996:316). Argentina: Migratorio de América del Norte.
Dos subespecies son las que migran hacia Sudamérica visitando Argentina, Chordeiles minor minor y Chordeiles minor chapmani (Lucero, 2019:6).
Se observa en Argentina en Jujuy, Salta, Tucumán, La Rioja, Santiago del Estero, Formosa, Chaco, Misiones, Corrientes, Córdoba, Buenos Aires, La Pampa, San Luis, San Juan,Entre Ríos, Santa Fe – Las subespecies C. m. minor y C. m. chapmani, superpondrían sus áreas de distribución en estas dos últimas provincias- según de la Peña, (2006:63). (ver coordenadas y referencias en los enlaces)
* C. minor minor, llega hasta Tucumán, La Rioja, Córdoba Santa Fe y Buenos Aires.
* C. m. chapmanni, llega hasta Formosa, Misiones, Corrientes, Santiago del Estero y Entre Ríos (de la Peña, 1999:90, 415); (Olrog, 1959:155); (de la Peña, 2016b).
HÁBITAT
Bosques abiertos, suburbios de ciudades y pueblos. Bordes de carreteras y ferrocarril; sabanas y pastizales abiertos, llanuras, praderas con árboles, pinares, laderas áridas, hábitats quemados. Desde el nivel del mar hasta los 2.500 msnm. (Stotz et al., 1996:172). Ecorregiones: en Argentina en Chaco seco, Chaco húmedo, Espinal, Esteros del Iberá y Selva Paranaense.
De hábitos diurnos y crepusculares. Generalmente solitarios (Tomkins, 1942:43), aunque los machos suelen posarse juntos.
Se posa en las ramas de los árboles, paralelo a la rama (Rust 1947:177), muy raramente perpendicular a ella (Fisher et al. 2004).
Los adultos tienen patas cortas y no de desplazan mucho por el suelo. Los juveniles pueden correr, con las alas verticales y boca abierta (Dexter, 1952:112).
Forma grandes bandadas durante los periodos de migración.
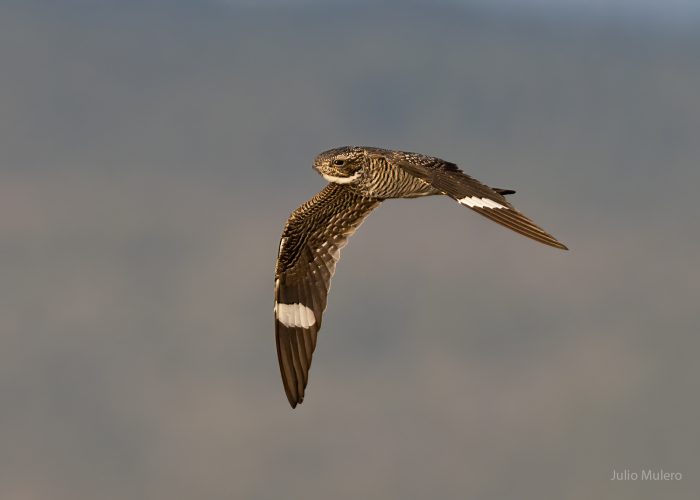
Vuelo alto y errático; aleteo continuo seguido de planeos cortos (de la Peña, 2015:327); los machos tienen un patrón de vuelo distintivo que alterna entre varios aleteos normales y varios aleteos rápidos (Suomala, 2020:5).
Se alimentan por lo general entre los 15-40 m, pero pueden llegar hasta por encima de los 175 m, descendiendo en grandes círculos hasta encontrar insectos (Rust 1947:177); (Wedgwood, 1973:82).
No son activos durante lluvias fuertes, vientos o temperaturas por debajo de los 5ºC (Wedgwood, 1973:82), siendo en cambio muy activos después de las tormentas (Russell (1999:381), con niebla, lloviznas y temperaturas altas. La velocidad de vuelo durante la alimentación es de unos 5.3 m/s (medida sobre una distancia conocida) (Brigham & Fenton, 1991:478), pero cuando se midieron con radar doppler se registraron velocidades mucho más rápidas: 6.5 m/s (Brigham et al., 1998:327) y 8.9-15.6 m/s (Sooter 1947:175).
La distancia promedio entre los sitios de reposo y alimentación es promedio de 2.7 km (DS ± 0.1, n=284 viajes); en algunas ubicaciones se alimentan en sitios adyacentes a los nidos y sitios de reposo, aunque en otras se alimentan en localizaciones específicas distantes de sus áreas de nidificación (Brigham & Fenton, 1991:480, Ng, 2009).
No vuelan en picado ni erráticamente como lo hacen normalmente mientras se alimentan, aunque algunos individuos vuelven volando en círculos a sus posiciones previas. McGowan & Woolfenden (1986:612) han descrito como baño aéreo bajo la lluvia: durante 10 minutos de vuelo bajo la lluvia, la bandada permanece en la misma área.
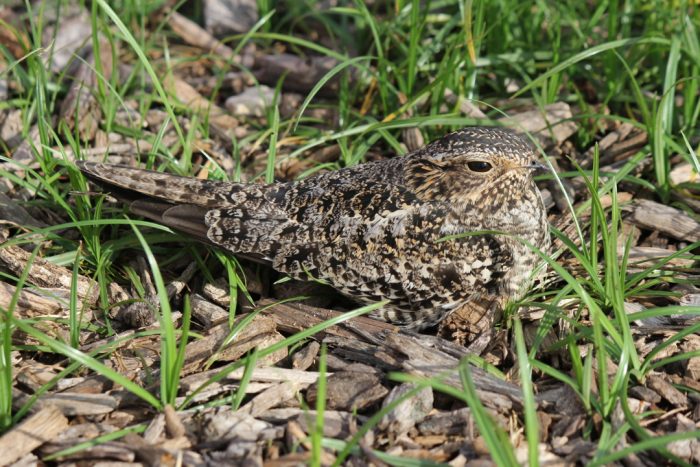
Se posan a lo largo de las ramas, postes cercanos, suelo, techos planos de los edificios. Su plumaje críptico hace difícil su detección (Brigham, 1994).
Según Brigham & Fenton (1991:482), los vuelos al crepúsculo comienzan 28.3 min (DS ± 4.2) antes de la puesta del sol y finalizan 68.2 min (DS ± 3.7) después de la puesta del sol. Los vuelos matinales comienzan 54 min (DS ± 6.3) antes del amanecer y se prolongan hasta cerca de 15 min (DS ± 8.7) después de la salida del sol.
Se observan a veces, vuelos nocturnos (probablemente no para alimentarse), y diurnos (generalmente después de una noche lluviosa o fría) (Rust 1947:177; Firman et al. 1993:157; Brigham, 1994). Las horas restantes del día, las hembras están en el nido y los machos posados cerca de él.
Como mecanismo de defensa ante los intrusos, emiten siseos, ahuecan las plumas, elevan las alas y abren la boca. Se lanzan en picado para defender el territorio de mapaches (Procyon lotor), humanos, ciclistas, vehículos todo terrenos y otros individuos de su especie (Armstrong 1965:619; Caccamise 1974:4). Gramza (1967:77), describe distintos tipos de respuestas, maniobras de distracción, cuando sale espantado del nido: abandona el campo visual, vuela cerca del área del nido, se posa a la vista del intruso y deja caer las alas y/o las mantiene extendidas, siempre a la vista del intruso extiende las alas y se lanza hacia él o se mantiene en su sitio.
Suomala (2020:5), comenta que un Añapero que se lanza en picado siempre es un macho, las hembras no se lanzan ni hacen ruido con las alas. Las hembras aunque emiten sonidos, no se oyen habitualmente. Si emite un sonido una o dos veces: podría ser hembra o macho, pero si vuelan en círculo sobre las cabezas y emiten sonidos continuamente, es un macho. Generalmente emiten llamadas muy rápidas cuando otro individuo está cerca. Un macho que está en periodo de reproducción silba rápidamente cuando la hembra está dejando o llega al nido.
VOCALIZACIONES
En esta especie no hay distinciones entre cantos y llamadas. Semejan a un zumbido (de la Peña, 2015:327). Sus vocalizaciones son de una estructura simple: “peent” nasal emitido durante el vuelo por ambos sexos. Más frecuentes en vuelo, aunque también sobre la zona de nidada o de apareamiento (Armstrong, 1965:619; Wedgwood, 1973:82; Caccamise, 1974:4). El pico de vocalizaciones se produce entre 30-45 min después del ocaso (Wedgwood, 1973:82; Wedgwood, 1991:214). La hembra emite un “cluck” gutural o un zumbido durante la defensa del nido (Tomkins, 1942:43; Parks, 1946:55; Dexter, 1952:110). Durante el cortejo, el macho emite un graznido “auk, auk, auk” cuando está en presencia de la hembra. Cuando son capturados, ambos sexos emiten un agresivo “wrrrrrroonk” mientras mantienen la boca abierta.
Sonidos no-vocales
Sonido estruendoso (booming sound), presumiblemente solo por el macho, producido por el aire a través de las remeras primarias después de una súbita flexión hacia abajo de las alas durante vuelo en picado (Bowles, 1921:203; Miller, 1925:141-143; Weller, 1958:57). Asociado al cortejo y defensa del territorio (sobre humanos y conespecíficos) (Dexter, 1952:110; Dexter, 1961:83), y no se han registrado fuera del periodo reproductivo.
Se ha registrado al macho batiendo las alas (Weller, 1958:57).
TERRITORIALIDAD
Wedgwood (1973:82) y Caccamise (1974:4) comentan que es una especie muy territorial; los machos casi nunca cruzan los límites del territorio, aunque Ng (2009) comprobó mediante seguimiento de individuos equipados con transmisores, que durante 1 año todos (n=5) sobrepasaban los límites.
El tamaño de los territorios varía en los diferentes hábitats (Wedgwood, 1973:82; Armstrong, 1965:619); tienen múltiples centros de actividad dentro de su territorio (descanso, nidificación), por ej. un macho descansa durante la noche en un área diferente de su territorio crepuscular y de su zona de reposo. Por el contrario, Roth & Jones (2001:107) describen en Boston, una defensa agresiva de su territorio ante una bandada migrante de con-específicos, alimentándose fuera de su territorio durante solo 4 de 42 noches. Concluyen que el sistema territorial es dinámico.
Cummings et al. (2003:423) comentan que de 214 individuos marcados y desplazados 44-88 km de una base militar para reducir los impactos con las aeronaves, solo 1 volvió al sitio de captura
Nidifica en solitario (Tomkins, 1942:43), con distancias entre los nidos de unos 75 m en un llano de 10 ha y de 85 m entre esquinas opuestas de un mismo edificio Sutton & Spencer, 1949:141). Pueden nidificar cerca de otras especies.
Pueden ser desplazados y perseguidos activamente por los murciélagos, sobre el agua (Boyce 1980:35) y en los sitios de alimentación (Shields & Bildstein, 1979:468). También son desplazados de áreas desérticas o con escasa disponibilidad de presas por el Chordeiles acutipennis (Caccamise, 1974:5, Skoruppa et al., 2009:317).
Insectívoro aéreo (Brigham, 1994:75); parece ser un cazador oportunista (Caccamise, 1974:6).
Se alimenta durante periodos cortos, en vuelo, y parece que captura más de una presa por ataque, aunque también ataca insectos individuales (Aldridge and Brigham 1991:68). Captura insectos voladores que se alimentan de la vegetación subyacente (Armstrong, 1965:619) o insectos atraídos por la luz (Shields & Bildstein, 1979:468).
Presumiblemente utiliza la visión para detectar y discriminar el tipo de presas (Brigham & Barclay, 1995:3); puede ser ayuda para la visión, la presencia de una tapeta lucidum (estructura reflectante dentro de la coroides, que mejoraría la visión nocturna reflejando la luz hacia la retina) (Nicol et al., 1974:349).
Cuando recién detecta las presas no distingue entre presas comestibles y aquellas que no lo son, aunque es capaz de de discriminarlas bien en los estadios finales de la captura (Brigham & Barclay, 1995:03).
El tiempo de alimentación de esta especie está limitado por la duración de luz tenue (alba y crepúsculo) (Aldridge & Brigham, 1991:62; Brigham & Fenton, 1991:482). No existen evidencias que se alimente durante la noche (Aldridge & Brigham, 1991:67-68; Brigham, 1994:75), aunque ocasionalmente lo hagan durante el día (Rust 1947:177; Firman et al. 1993:157; Russell 1999:381).
En vuelo, aproximadamente 1 m por encima del agua (Brigham, 1990:75) y en el dosel a ≥ 80 m (Boyce, 1980:35); muy raramente sobre el suelo (Rust, 1947:177)
Suelen alimentarse en grandes grupos (el autor observó 110), con una separación de hasta 20 m entre individuos (Ewins, 1993:75), aunque existe registros de bandadas de 50-300 individuos (Brigham & Fenton, 1991:484; Brigham & Barclay, 1995:3) y hasta 1000 individuos en Kansas (Cummings et al, 2003:423).
Dieta
Aunque se han descrito que se alimentan de más de 50 especies de insectos, en su mayoría consumen hormigas voladoras, avispas (Hymenoptera, Blem, 1972:42; Caccamise, 1974:8), escarabajos (Coleoptera, Todd et al. 1998:20), moscas (Trichoptera, Brigham, 1990:75), polillas (Lepidoptera, Cummings et al., 2002:39), cigarras (Homoptera, Firman et al. 1993:157), moscas del sábalo (Ephemeroptera), tábanos (Diptera) y saltamontes (Orthoptera) (Brigham, 1990:75; Brigham & Fenton, 1991:484; Firman et al., 1993:157; Todd et al., 1998:22; Blem, 1972 :492-493; Bent, 1940:208; Stevenson, 1933:983; Poole, 1938:511-517).
Esta variabilidad refleja las diferencias en la disponibilidad de presas; comparado con la proporción de insectos disponibles consumen, más de lo esperado, Coleoptera e Hymenoptera mientras que evitan Diptera. Solo Trichoptera y Lepidoptera son consumidos en proporción a su abundancia (Todd et al., 1998:20).
Rust (1947:177), analizó el contenido estomacal de individuos de esta especie y refiere que el 75% de los individuos consumían 100% materia animal (insectos), mientras que el otro 25% consumía 60-90% de materia animal y 10-40% de vegetación y gravilla.
Beben agua en vuelo, a través de la boca, sobrevolando la superficie de los lagos, ríos, etc. Suelen defecar en los alrededores del nido y sitios de posado. También defecan rápidamente en la mano cuando son apresados. Ocasionalmente defecan en vuelo (Brigham et al, 2020).
METABOLISMO Y REGULACIÓN DE LA TEMPERATURA
Según los autores (Lasiewski & Dawson, 1964:488) tiene un metabolismo estándar de 1.1 ml O2/g/h, que se ajusta a las predicciones de tamaño de la especie. El metabolismo aumenta cuando la temperatura ambiente desciende de los 35º C. Por encima de los 35º C, el metabolismo aumenta asociado al aumento de actividad para aumentar el enfriamiento evaporativo (la pérdida de agua evaporativa aumenta cuando aumenta la temperatura ambiente). A través de la evaporación pueden disipar 1.5 veces el calor producido por el metabolismo. Generalmente mantienen su temperatura corporal en un rango muy estrecho (34-40º C) aún a temperaturas ambiente de muy frías a moderadas (2-35º C).
En respuesta al estrés del calor, aumentan la pérdida evaporativa expandiendo zona gular (Howell, 1959:26); también buscan refugio en posiciones opuestas al sol (posan en pendientes al Norte) y ahuecan las plumas (Weller, 1958:53; Gramza 1967:72; Fisher et al. 2004:83).
Un posible mecanismo de termoregulación, que comienza a los 42º C , es a través de la vasodilatación de la zona interna de la boca (muy vascularizada y relativamente grande, 15% de su superficie corporal) (Cowles & Dawson, 1951:21).
Se ha observado que las hembras, cuando incuban, orientan el cuerpo a lo largo de los ejes de los rayos del sol, con la cabeza alejada de él. Sin embargo en días nublados no repite esta posición (Weller, 1958:53).
En los días de calor los polluelos se acurrucan bajo la vegetación (Fowle, 1946:159). Son homeotermos imperfectos alcanzando una termoregulación efectiva, como la de los adultos, a los 21 días de vida (Howell, 1959:30).
Raramente entran en letargo. No existen evidencias directas de su uso en British Columbia (Firman et al., 1993:157), ocasionalmente en Saskatchewan (Fletcher et al., 2004:11) y un uso anecdótico en Alberta y British Columbia (Brigham et al., 1995:03).
REPRODUCCIÓN
Suomala (2020:2), describe el cortejo del macho: vuelo en círculos sobre el sitio potencial del nido pronunciando una serie de llamadas ásperas “peent”. A intervalos regulares se lanza hacia el área del posible nido, y bruscamente retoma el vuelo hacia arriba. La vibración de las plumas de sus remeras primarias produce un sonido estridente (booming sound). La intensidad del sonido es más o menos proporcional a la velocidad alcanzada (Miller, 1925:143; Miller 1937:42). Luego, el macho desciende al suelo cerca de la hembra, despliega la cola y se menea de un lado a otro. Sacude el cuerpo y abomba la garganta exponiendo el parche blanco, que combina con notas guturales. El cortejo se repite hasta la copulación (Gross, 1949; Bent, 1940:208).
Estas son las maneras del macho para atraer a su pareja potencial, pero el macho algunas veces se lanza en picado sobre las hembras, otros machos o depredadores (incluyendo personas) que están cerca del nido o de los polluelos (Rust 1947:177). El macho no protege directamente el nido (Dexter, 1952:110); la hembra al sentirse agredida, simula estar herida (se aleja volando y emite sonidos siseantes) (Tomkins, 1942:47).
El sitio de anidamiento lo elige la hembra (Campbell et al., 2006:44), y vuelve a él en años sucesivos (Dexter, 1952:109; Dexter, 1956:10; Dexter, 1961:79), aunque se ha registrado que los machos, durante al menos dos estaciones, eran diferentes.
Se han encontrado nidos en British Columbia desde el nivel del mar hasta los 1.495 m (Campbell et al., 2006:45).
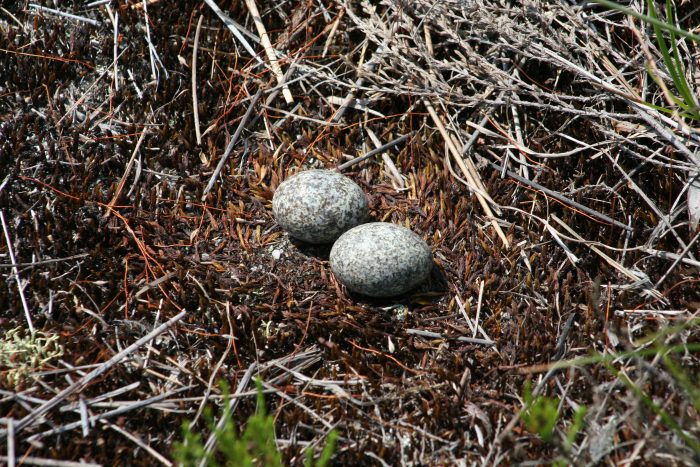
Esta especie deposita los huevos directamente sobre el suelo desnudo (Dexter, 1956:10; Larson, 1970:3; Parks, 1946:55; Campbell et al., 206:45) y no construye ningún tipo de nido (Suomala, 2020:2); a veces los deposita en tocones o terrazas de arena gruesa; en sabanas y campos en zonas de temperatura tropical (American Ornithologist’s Union, 1983:308; Campbell et al., 2006:45; Fowle, 1946:159; Howell, 1959:19). También en alrededores de hábitats humanos (chimeneas, techos y cornisas (Abbot, 1914:10; Bowles 1921: 203; Parks, 1946:55; Sutton & Spencer, 1949:148; Dexter, 1956:10; Weller, 1958:57; Wedgwood, 1973:82).
El macho se posa durante el día en árboles cercanos al sitio de nidificación (Rust 1947:177; Fisher et al. 2004:83).
Puesta de 2 huevos en días sucesivos (Hiam & Sutherland, 1979:98; Fowle, 1946:159; Dexter, 1952:113; Dexter 1956:10; Dexter, 1961:79; Howell 1959:24; Rust 1947:177), entre los meses de mayo y julio (Cowles & Dawson 1951:19; Dexter, 1952:109; Fowle, 1946:159; Rust, 1947:177).
La hembra deja desatendidos los huevos o los polluelos solo para alimentarse al anochecer (Bowles 1921:208; Rust 1947:177; Dexter, 1952:109; Weller, 1958:52).
Mueven los huevos y polluelos con el pico, pies y plumas del pecho por razones termorregulatorias (Weller, 1958:54).
Si falla la nidada durante la incubación o a la salida del cascarón, la hembra se mueve a una nueva localización y lo intenta nuevamente (hasta 3 veces) (Suomala, 2020:2; Weller, 1958:57).
Huevos elípticos-ovales de color beige a gris-oliva pálido (Hiam & Sutherland, 1979:98), con un extremo ligeramente más pequeño que el otro y profusamente moteado de gris, castaño y negro. La cáscara sólida y moderadamente brillante.
La incubación (16-20 días) la realiza la hembra (Hiam & Sutherland, 1979:98; Tomkins, 1942:43; Rust, 1947:177; Brigham, 1989:723; Larson, 1970:4; Sutton & Spencer 1949:148; Dexter, 1952:109; Howell, 1959:24), aunque ocasionalmente la puede realizar el macho (Dexter, 1961:79).
Las crías son muy activas desde el nacimiento, mantienen la cabeza erguida y la mueven hacia los lados; ojos abiertos. Son capaces de desplazarse el primer día ante los llamados de la hembra (Fowle, 1946:160; Rust, 1947:177; Weller, 1958:56).
Generalmente silenciosos, emiten suaves “peep” cuando son manipulados (Fowle, 1946:160).
Ambos padres cuidan los pichones, que alimentan por regurgitación, al amanecer y atardecer. El macho asume la alimentación de los pichones y de la hembra mientras la hembra incuba la segunda puesta (Weller, 1958:58; Brigham, 1989:723).
En los días de temperaturas extremas las crías encuentran protección bajo su madre.
A los 16 días son capaces de levantarse y acostarse, y a los 18 días son capaces de realizar su primer vuelo (Rust, 1947:177; Dexter, 1952:113; Sutton & Spencer, 1949:148 ), aunque recién entre los 45-50 está completamente desarrollado y es capaz de unirse a la bandada (Rust 1947:177).
Captura su propia comida aproximadamente a los 25 días, aunque permanecen en el área de nidificación durante al menos 40 días (Suomala, 2020:2).
Controlan la temperatura moviéndose hacia sitios de sombra (Dexter, 1952:110) o vegetación (Fowle, 1946:159).
MIGRACIÓN
Migrante Neártica (Barnett & Pearman, 2001:48). Migran día y noche, aunque la mayoría han sido observados al atardecer en otoño.
Atraviesan grandes distancias entre sus áreas de reproducción áreas de invernada.
Generalmente llegan en primavera al sur de EEUU, y parten hacia el sur a comienzos de julio tanto de las áreas de nidificación del norte y sur de EEUU y Canadá.
Se vuelven gregarios durante la migración de otoño,y se han avistado bandadas de hasta 1.000 individuos (Ewins, 1993:75; De Graff, 1978:122; Bryant & Bryant, 1945:47). Las bandadas forman un rectángulo de 8-10 individuos de ancho y 15-20 de largo; vuelan rápido, aleteando al unísono, sin líder aparente (Rust, 1947:177).
Es una de las especies más tardías en arribar a los sitios de reproducción en primavera y una de las más tempranas en migrar en otoño hacia el sur (Cummings et al., 2003:423).
La mayoría viajan sobre Centroamérica, pasando por zonas centrales de Sudamérica, al este de los Andes, tanto a la ida como a la vuelta. Otro gran número de individuos pasa, en otoño, a través de Florida (Stevenson & Anderson 1994:373) y Cuba y los migrantes de primavera llegan a Florida a principios de abril (Stevenson & Anderson, 1994:373) y Bahamas desde el Golfo de México, lo que indica que esta especie no circunvala el golfo.
Según los datos publicados, en Sudamérica emprenden el regreso hacia sus sitios de reproducción en primavera; marzo en Paraguay y SE de Brasil (Hayes et al., 1990:955; Sick, 1997:417); marzo – abril a través de Colombia (Hilty & Brown, 1986) y a finales de mayo de Ecuador.
Llegan a EEUU entre abril y junio (Stevenson & Anderson, 1994:373; Rust 1947:177; Campbell et al. 2006:32). Las hembras arriban 2-7 días antes que los machos en Idaho, generalmente en grupos pequeños (Rust, 1947:177).
En otoño la migración hacia sudamérica se inicia en el mes de agosto hasta mediados de octubre (Bryant & Bryant, 1945:47; Wedgwood, 1973:82; American Ornithologist’s Union, 1983:308). En Florida desde mediados de julio hasta octubre (Stevenson & Anderson, 1994:373).
Llegan a Colombia y Venezuela desde finales de agosto a noviembre; a Manaos y Río Grande do Sul, en Brasil, de octubre a diciembre (Stotz et al., 1992:614); Paraguay en octubre (Hayes et al., 1990:955).
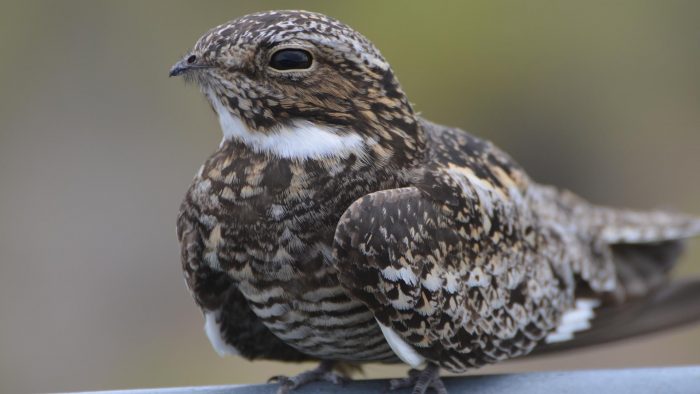
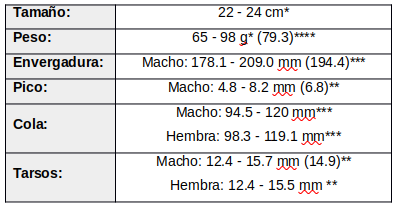
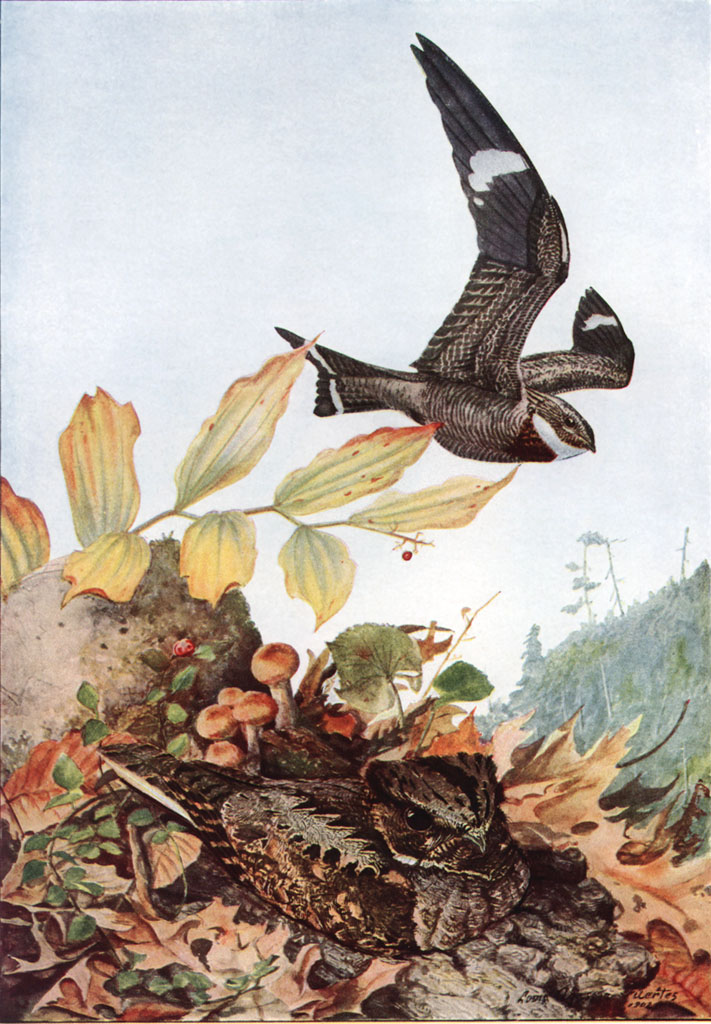
De tamaño medio, mide unos 22-24 cm desde la punta del pico al final de la cola; plumaje críptico.
Sexos ligeramente dimórficos. Muy similares, especialmente en vuelo. Aunque el macho tiene una barra blanca al final de la cola, y las hembras carecen de ella, es prácticamente imposible distinguirlos en vuelo. La característica más visible del macho es su garganta blanca brillante, que en la hembra es beige-amarillenta pálida que en vuelo a menudo se observa más oscura. (Suomala, 2020:4); (Narosky, 2010:191); (Narosky & Chébez, 2002:61); (Salvador et al., 2017:48); (de la Peña, 2015:327)
Macho: partes superiores castaño-grisáceas, marcadas irregularmente con motas parduzcas y blanquecinas, más tupidas en zona supraescapular y menos frecuentes en corona y espalda que a menudo no tiene marcas.
Cabeza grande, aplanada con grandes ojos; iris marrón oscuro.
Línea superciliar formada por pequeñas manchas blanquecinas en la parte anterior y más oscuras en la posterior.
Lores con vibrisas cortas que se extienden en la base del pico.
Franja malar amplia y lados de la cabeza y cuello castaño negruzco moteada de blanco y canela; ambos lados del cuello profusamente manchado con líneas blanquecinas y castañas claras.
Amplia franja blanca con forma de medialuna que se extiende desde la mitad de la barba hasta los lados de la garganta.
Parte inferior de la garganta y zona superior del pecho castaño grisáceo con llamativas manchas leonadas y blanquecinas
Pecho con manchas y barras quebradas de color beige claro y blanquecinas; el resto de partes inferiores blanquecinas barradas de castaño oscuro que se extiende hasta las cubiertas subcaudales.
Pico corto y ancho, boca grande.
Alas relativamente largas y puntiagudas que se extienden a lo largo del cuerpo hasta apenas más allá del final de la cola. Color castaño con motas blanquecinas.
Las remeras son ligeramente más oscuras que las timoneras; las 6 primarias externas cruzadas por una ancha banda blanca posterior a la punta de p9; la mitad externa del vexilo interno de las remeras secundarias con barras estrechas castaño-grisáceas a blanquecinas; las remeras terciarias con motas castañas claras y blanquecinas; cubiertas alares similares a las primarias con moteado castaño claro a blanquecino pero más irregular.
Tienen 10 remeras primarias funcionales, 12-13 secundarias (incluyendo 3 terciarias) (Bostwick & Brady 2002:948)
Abdomen y flancos profusamente barrados.
Cola corta y ligeramente furcada, castaño-grisácea, cruzada por 7 barras irregulares castaño-blanquecinas y castañas claras (más blancas en las timoneras centrales) y por una amplia banda subterminal blanca sobre las 4 timoneras externas (r2-r5)
con barra blanca (ausente en las hembras) y parche blanco en la garganta (beige -amarillento en las hembras); 10 timoneras (Bostwick & Brady 2002:948)
Patas pequeñas, cortas y débiles.
Roth y col. (2003:191) describieron que en el macho, a medida que aumentaba la edad, aumentaba significativamente el tamaño de la banda de la cola, aunque no el tamaño del parche en la garganta. Hembra: Similar al macho, pero con (1) parche blanco de las alas (formado por la base blanca de las primarias) más pequeño y moteado; (2) cola sin barra blanca sub-terminal; (3) franja con forma de medialuna en la garganta color beige a ocrácea, a menudo moteada de oscuro; (4)zonas inferiores castañas, o más ocráceas, especialmente en parte posterior; (5) barras ventrales más anchas; y (6) moteado dorsal más grosero.
Se han registrado casos de plumajes aberrantes, como un caso de albinismo de un ejemplar recolectado en Lynchburg (Virginia) (Strother, 1886) y 2 especímenes con albinismo parcial (Ross 1963:11)
* (Suomala, 2020:4) ** (Oberholser, 1974; Godfrey, 1986) *** (Selander, 1954:65) **** (Brigham & Fenton, 1991:477)
MUDAS
Ver descripción detallada y variación del plumaje en (Bostwick & Brady, 2002:948); (Ridgway, 1914:490); (Pyle, 1995:21); (Fowle, 1946:159-160); (Selander, 1954:57-59); (Goossen, 1986:62); (Dickerman, 1990:610); (Pyle, 2006:179); (Howell et al., 2003:635 y 645; 2004:209)
Variación geográfica
La variación geográfica en esta especie es compleja dado su plumaje críptico, con colores y marcas tan sutiles e intrincadas.
A lo largo de su amplio rango de reproducción (que cubre casi toda América del Norte), existe una amplia variación en el color (saturación) y patrón del plumaje, y en menos medida en el tamaño corporal.
El Chordeiles minor exhibe una dilatada e inusual variación individual, tanto en el color como en el patrón del plumaje (Selander 1954:63); además, la coloración ventral varía de blanquecina en el Este y Centro de América del Norte a blanca en el Oeste.
También se ha descrito variación geográfica en los juveniles (Dickerman 1990:610).
El tamaño tiende a disminuir de norte a sur, aunque en promedio, los individuos más grandes se encuentran en las grandes planicies del norte (Selander 1954:64).
Existe el debate taxonómico si el orden Caprimulgiforme es monofilético (como tradicionalmente se ha reconocido) (Barrowclough et al., 2006; Livezey & Zusi, 2007:94; Hackett et al., 2008:1765; Braun & Huddleston, 2009:948; Mayr, 2010:126; Mariaux & Braun, 1996:228) o parafilético según estudios moleculares recientes (Braun & Huddleston, 2009:948).
Según Han et al. (2010:443), dentro del género Chordeiles, el C. minor es hermano del C. gundlachii. Estas especies son morfológicamente similares y sobre ésta base fueron tratadas como con-específicas durante muchas décadas, a pesar de la marcada diferencia en sus “llamadas” (Wetmore & Swales, 1931:256; Am. Ornithol. Union, 1957:307; Eisenmann, 1962:10)
Además de las diferencias en las “llamadas”, estas especies, durante la reproducción, se solapan en los Cayos de Florida (simpátricas) (Nicholson, 1957:506) y difieren en sus huevos, plumaje natal, juvenil y enzimas proteicas (Stevenson et al., 1983:983).
SUBESPECIES Y DISTRIBUCIÓN
Se reconocen 9 subespecies basándose en el tamaño y coloración del plumaje (Brigham et al, 2020). (Retos de identificación: los nighthawks del género Chordeiles)
La coloración del barrado ventral y el moteado dorsal son diferentes entre los sexos, mucho más notorio en algunas subespecies (por ej., C. m. sennetti, C. m. howelli) que en otras (por ej., C. m. henryi, C. m. minor), siendo el C. m. howelli el que muestra mayor dimorfismo sexual (Selander 1954:58).
Todas las especies migran en invierno a través de América Central hacia Sudamérica, al Este de los Andes y hasta en Norte de Argentina, pero aún se desconoce el alcance específico de esta migración invernal en algunas de las subespecies.
* Chordeiles minor minor Distribución C . m. minor (Forster, 1771). Incluye a: C. virginianus (Gmelin, 1789), C. popetue (Vieillot, 1807), C. americanus (Wilson, 1812), C. variegatus (Vieillot, 1817), C. jaspideus (Merrem, 1826) y C. wiederspergii (Reichenbach, 1846). Se reproducen desde el Sudeste de Alaska y Sur de Yukón hacia el Este hacia la Bahía de Hudson y Newfoundland y hacia el Sur hasta el Noroeste de Washington a través del Sur de Canadá y Norte de los Grandes Lagos Sur y Este de Oklahoma y Este y Sur de Carolina del Sur; los migrantes han alcanzado el Oeste de Europa al menos en 30 ocasiones. Identificación
Es el más oscuro de todas las subespecies. Dorso gris castaño oscuro moteado de color beige o blanquecino. Las marcas leonadas, restringidas al pecho. Barras ventrales negras, densas y anchas. Banda alar blanca de tamaño Tamaño medio (envergadura macho:184-208 mm -Cleere, 1998)
* Chordeiles minor hesperis Distribución C. m. hesperis (Grinnell, 1905). Incluye a C. m. twomeyi (Hawkins, 1948) (Selander 1954:69), y C. m. divisus (Oberholser, 1914) (Browning 1978:89). Históricamente llamado Añapero del Pacífico, se reproduce desde el Sureste de la Columbia Británica hacia el Este hasta el Suroeste de Saskatchewan y a través del centro de Nevada hacia el Oeste de Wyoming y Noroeste de Colorado. Identificación
Oscuro como el C. m. minor, pero en general menos negruzco, moteado dorsal grisáceo, escaso barrado ventral, las marcas del pecho más tenues (más ocráceas y menos amarillentas), y extensas bandas alares.
* Chordeiles minor sennetti Distribución C. m. sennetti (Coues, 1888).
Se reproduce en las Grandes Planicies desde el Sur de Saskatchewan y Sur a Este de Manitoba hacia el Noroeste de Iowa. Identificación
Blanquecino (es la subespecie más pálida). Similar al C. m. hesperis pero con dorso más pálido y más grisáceo que negruzco, barras ventrales estrechas, más tupidas, y castaño-grisáceas; dorso más claro y más grisáceo, barras ventrales estrechas, tupidas, pardo-grisáceas; pecho gris; más grande (envergadura 186-223 mm; Cleere, 1998).
* Chordeiles minor howelli Distribución C. m. howelli (Oberholser, 1914). Se reproduce al sur de las grandes planicies, desde el centro de Colorado y oeste de Kansas hacia el sur y noreste de Nuevo México, oeste de Oklahoma y norte de Texas. Identificación
Intermedio entre el C. m. minor (más oscuro) y C. m. sennetti (más claro).
* Chordeiles minor henryi Distribución C. m. henryi (Cassin, 1855). Llamado Añapero del oeste (Western Nighthawk). Se reproduce en el sudeste árido del sur de Utah y suroeste de Colorado hacia el sur a través del sureste de Arizona, la mayoría de Nuevo México, y montañas del oeste de Texas al este de Sonora, Chihuahua y Durango. Identificación
Oscuro como el C. m. minor, pero menos grisáceo; más pardo en general con las marcas del pecho más castaño-rojizas.
* Chordeiles minor aserriensis Distribución C. m. aserriensis (Cherrie, 1896). Se reproduce a lo largo de la costa desde centro y sur de Texas hasta el norte de Veracruz. Identificación
Similar al C. m. chapmani pero más grisáceo en su conjunto; barras ventrales estrechas pardo-grisáceas, parte externa de la cloaca blanca.
* Chordeiles minor chapmanni Distribución C. m. chapmanni (Coues, 1888). Llamado Florida o Chapman’s Nighthawk. Se reproduce a lo largo de la pendiente del golfo, desde el este de Texas hasta Florida y, sobre la vertiente atlántica a través del norte de la península de Florida hasta Carolina del sur.
EE. UU. (Florida, Texas, Carolina), este de México, Costa Rica, Nicaragua hasta el S. Brasil (Matto Grosso, Río Grande do Sul), Paraguay, Uruguay, Argentina (Córdoba, Sgo. del Estero, Tucumán, Corrientes, Bs. Aires) (Zotta, 1937:548); (Brodkorb, 1938:4) Identificación
Similar al C. m. minor pero de menor tamaño (envergadura 178–196 mm), grisáceo (o pardo-grisáceo oscuro), moteado dorsal escaso y beige opaco, vientre blanco.
* Chordeiles minor neotropicalis Distribución C. m. neotropicalis (Selander & Alvarez del Toro, 1955:144). Se reproduce desde Veracruz hacia centro de Chiapas, Guatemala,hacia suroeste de Honduras. Identificación
Como el C. m. chapmani con motas dorsales tupidas de color beige, barras ventrales estrechas y pardas, y parte externa de la cloaca beige; ligeramente más grande.
* Chordeiles minor panamensis Distribución C. m. panamensis (Eisenmann, 1962). Se reproduce en el sur de Centroamérica, desde Nicaragua s. Central America, from Nicaragua, a través de Panamá. Identificación
Como el C. m. chapmani pero con la banda alar blanca mucho más pequeña, dorso más castaño-rojizo con moteado más amarillento-oscuro y vientre más beige.
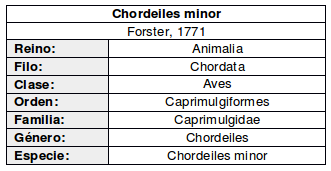
El Añapero Boreal pertenece a la familia Caprimugidae, son aves activas al amanecer y anochecer, tanto en áreas rurales como urbanas.
El añapero boreal sigue siendo una especie poco conocida, sobre todo en lo que concierne a sus hábitos en la zona sur de su área de reproducción y áreas de invernada en Sudamérica.
Estudios recientes sugieren que, se está produciendo una disminución sustancial en el número de individuos de esta especie, tal vez debido a aumento de depredación, el uso indiscriminado de pesticidas que determina una disminución en el número de insectos, o pérdida del hábitat. En Canadá se supone que esta disminución es del 50% en las últimas 3 generaciones, por lo que se la considera como especie “amenazada” (Suomala, 2020:2).
Orden Caprimulgiformes: 8 Familias; en la Provincia de Misiones: 4 familias (Nyctibiidae; Caprimulgidae; Apodidae y Trochilidae) y 43 especies. Familia Caprimulgidae: 12 especies en la provincia
En Paraguay, el nombre guaraní Yvyja’u es usado para casi todos los atajacaminos, éste significa “que come o chupa tierra”. También en guaraní se usa Guyra Ate´ỹ (Pájaro haragán); Yvyja’u Jetapa (Atajacaminos Tijera) para Hydropsalis torquata; Guyra Tape (Pájaro del sendero o camino), Guyra Tavy (Pájaro bobo) y Guyra Kerana (Pájaro dormilón) para varias especies; y Guyra Ate´ỹ se usa comúnmente para todos los géneros, principalmente Caprimulgus, Nyctidromus e Hydropsalis.
Se los llama “chotacabras” por la creencia que beben leche de cabra por las noches (la palabra latina para chotacabras o cabra ordeñador es Caprimulgus). En el pasado, los pájaros que vuelan de noche, como los chotacabras, eran sospechosos de brujería.
Nocturnos y otros crepusculares. De día inmóviles en el suelo o en ramas, en posición horizontal
Vuelo quebrado y silencioso
2 huevos manchados en el suelo
Miméticos; Cabeza grande; Patas, pico y cuello cortos
Boca amplia rodeada de vibrisas. Ojos rojos de noche, reflejan la luz cuando son iluminados. Alas y cola largas.
DESCRIPCIÓN
La mayoría son pájaros de hábitos nocturnos o crepusculares. Producen sonidos deslumbrantes, extraños, que han sido rodeados de un halo de misterio que ha despertado el interés, y algunas veces miedo, en los hombres.
Dimorfismo sexual. Varias especies se identifican por el canto.
Son pájaros de entre 14-55 cm con enormes bocas, que siguen un modelo de color en su plumaje, piernas cortas y largas alas en su mayoría. Su apariencia críptica – con un plumaje que se colorea para asemejarse a la corteza o las hojas – se integra perfectamente en su hábitat y los hace muy difíciles de detectar durante el día, cuando se suelen esconder para dormir. Todos tienen una apariencia similar, pero cada familia tiene sus características peculiares tanto en su forma como en sus hábitats. Los colores de las plumas adoptan tonos de camuflaje natural: ocres, marrones y grises.
Se reconocen por sus enormes bocas, grandes ojos, iris marrón, piernas cortas y pies débiles. Plumaje suave de color gris-beige.
La cola de tamaño mediano, salvo en las hembras que se adornan con plumas largas ornamentales.
Los “parientes” más cercanos son los búhos, a los que se parecen, pero se diferencian en:
Pies y pico no son de rapaces, cabeza más plana con ojos localizados lateralmente más que en el disco facial frontal, Tarsos relativamente más cortos y largas colas.
Ampliamente distribuidos en el mundo, ausente en Nueva Zelanda.
Su actividad limitada al crepúsculo o nocturna cuando hay suficiente iluminación (artificial o luna llena). Pocas son diurnas.
Se alimentan en vuelo, se posan en los tejados o ramas horizontales de los árboles.
No tienen competidores aéreos en cuanto a la caza de insectos nocturnos.
VOCALIZACIONES
Sonidos vocales y mecánicos. Utilizan diferentes tipos de llamadas dependiendo del contexto, pero la canción primaria, diferente para cada especie, parece ser el mecanismo más importante para el reconocimiento de la especie.
Aparte de las vocalizaciones muchas especies producen sonidos mecánicos como clap con las alas. Algunos vocalizan fundamentalmente en vuelo, otras especies cuando están posados, incluso tiene diferentes llamadas en vuelo o cuando se posan.
REPRODUCCIÓN
No construyen nido, depositan sus huevos directamente sobre el suelo. Huevos moteados de pardo. Incubación de al menos 19 días por los padres.
Los pichones son bastante precoces. Cubiertos con plumón amarronado liso o moteado, son alimentados por ambos padres, abren sus ojos y caminan el 1º día, saltan y corren al 3-4º día.
Vuelan a los 22-28 días. Dependen de la alimentación de sus padres hasta que comienzan a volar y son capaces de alimentarse por su cuenta a los 40-45 días.
BIBLIOGRAFÍA
Albin, Eleazar, Derham W. & Albin, Elizabeth (1731-1738). A natural history of birds: illustrated with a hundred and one copper plates, curiously engraven from the life. London, Printed for the author and sold by William Innys in St. Paul’s Church yard, John Clarke under the Royal-Exchange, Cornhill & John Brindley at the King’s Arms in New Bond-Street; Vol 1: 10
The New Encyclopaedia Britannica (1998). (15º Ed.) Vol 15 Macropedia: 78-81
Narosky T. & Yzurieta D. (2010). Guía de Identificación de Aves de Argentina y Uruguay. Vázquez Mazzini Editores: 41
De la Peña, M. R. (2010). Aves Argentinas. EUDEBA (1º Ed.) Santa Fe, UNL; CABA; Vol 1: 326-329
Bodrati, A. & Areta, J. I. (2010). Dos nuevos dormilones para la avifauna argentina (Chordeiles acutipennis y Caprimulgus maculicaudus) y comentarios sobre hábitat, comportamiento y geonemia en Paraguay. Hornero 025 (02): 067-073 (enlace)
Administración de Parques Nacionales (S.I.B.); Ficha: Veniliornis spilogaster – Carpintero Oliva manchado. Recuperado en enero 2022 de https://sib.gob.ar/especies/Veniliornis-spilogaster
Aleixo, A. & Galetti, M. (1997). The conservation of the avifauna in a lowland Atlantic forest in south-east Brazil. Bird Conservation International. 7(3): 235–261. (enlace)
Anjos, L. (2001). Bird communities in five Atlantic forest fragments in southern Brazil. Orn. Neotropical. 12(1): 11–27. (enlace)
Anjos, L. & Schuchmann, K. L. (1997). Biogeographical affinities of the avifauna of the Tibagi River Basin, Paraná drainage system, southern Brazil. Ecotropica 3(1): 43–65. (enlace)
Anjos, L., Schuchmann, K. L. & Berndt, R. (1997). Avifaunal composition, species richness, and status in the Tibagi River Basin, Paraná state, southern Brazil. Orn. Neotropical. 8(2): 145–173. (enlace)
ArgentAvis (s.f.). Ficha: Carpintero Oliva Manchado (Dryobates spilogaster). Recuperado en enero 2022 de http://argentavis.com.ar/2012/sitio/especie_co.php?id=592
Azpiroz, A., M. Mattalia, B. López-Lanús & L. L. Sosa (2013). Caracterización ornitológica y productiva del campo “General Ávalos” Monte Caseros, Corrientes, informe técnico de Aves Argentinas/AOP: diciembre 2010. En pp. 351-373: G. D. Marino, F. Miñarro, M. E. Zaccagnini y B. López-Lanús (eds.). Pastizales y sabanas del cono sur de Sudamérica: iniciativas para su conservación en la Argentina. Temas de Naturaleza y Conservación, Monografía de Aves Argentinas No 9. Aves Argentinas/AOP, Fundación Vida Silvestre Argentina e Instituto Nacional de Tecnología Agropecuaria. Buenos Aires, Argentina. (enlace)
Baliño. J. (1984a). Aves del Parque Nacional El Palmar, lista sistemática y otras contribuciones a su conocimiento. Rev. Mus. Arg. Cs. Nat. Zool. 13: 499-511.
Baliño, J. J. & F. J. Biole (1984b). La avifauna de nuestros Parques Nacionales. Nuestras Aves 5: 28-30.
Barnett J. M. & Pearman M. (2001). Lista Comentada de las Aves Argentinas. Editorial Lynx, Barcelona
Belton, W. (1984). Birds of Rio Grande do Sul, Brazil. Part 1. Rheidae through Furnariidae. Bulletin of the American Museum of Natural History 178(4): 369–636.(enlace)
Beltzer, A. H., P. A. Collins & M. A. Quiroga (2006). Atlas ornitogeográfico de la provincia de Entre Ríos. Serie Climax Nº 13.Ceride-Conicet. Santa Fe.
Bencke, G. A. & A. Kindel (1999). Bird counts along an altitudinal gradient of Atlantic forest in northeastern Rio Grande do Sul, Brazil. Ararajuba 7(2):91–107. (enlace)
Brooks, T. M., R. Barnes, L. Bartrina, S. H. M. Butchart, R. P. Clay, E. Z. Esquivel, N. I. Etcheverry, J. C. Lowen & J. Vincent (1992). Bird Surveys and Conservation in the Paraguayan Atlantic Forest: Project CANOPY ’92. Final Report. BirdLife Study Report 57. BirdLife International, Cambridge, UK. (enlace)
BirdLife International (2022). Species factsheet: Veniliornisspilogaster. Downloaded from http://www.birdlife.org on 08/04/2022.
Capper, D. R., Esquivel, E. Z., Pople, R. G., Burfield, I. J., Clay, R. P., Kennedy, C. P. & Mazar Barnett, J. (2000). Surveys and recommendations for the management of Aguará Ñu in the Reserva Natural del Bosque Mbaracayú, eastern Paraguay. Unpublished report.
Bodrati, A., Cockle, K., Segovia, J. M., Roesler, I., Areta, J. I., & Jordan, E. (2010). La avifauna del Parque Provincial Cruce Caballero, Provincia de Misiones, Argentina. Cotinga, 32, 41-64. (enlace)
Bodrati, A., Areta, J. I., & White, E. (2012). La avifauna de la Posada y Reserva Puerto Bemberg, Misiones, Argentina. Nuestras Aves 57: 63-79. (enlace)
Camperi, A. R., & Darrieu, C. A. (2001). Avifauna de Catamarca: lista comentada de especies (No-Passeriformes). Physis, 134-135.
Capllonch, P., Lobo, R., Ortiz, D. & R. Ovejero (2005). La avifauna de la selva de galería en el noreste de Corrientes, Argentina: Biodiversidad, patrones distribución y migración. Insugeo, Miscelánea, 14: 483-498. (enlace)
Capmourteres, V., V. Bauni, J. M. Meluso, S. Bogan & M. Homberg (2015). Aves de la Reserva Natural Campo San Juan, Misiones: descripción e implicancias para su conservación. Nótulas Faunísticas. Segunda Serie. No 171: 1-14 (enlace)
Categorización de las Aves de la Argentina según su estado de conservación (2015). Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas (enlace)
Chébez, J. C. (1996). Fauna Misionera Catálogo Sistemático y Zoogeográfico de los Vertebrados de la Provincia de Misiones (Argentina. (1º Ed.) Monografía N.º 5. L.O.L.A. (Literature of Latin America); Buenos Aires, Argentina; 320 pp.. ISSN 0328-1620
Cockle, K., Martin, K., & Wiebe, K. (2008). Availability of cavities for nesting birds in the Atlantic forest, Argentina. Ornitologia Neotropical, 19(Supplement), 269-278. (enlace)
Contreras, J. R. (1981). Lista preliminar de la avifauna correntina. I. No Passeriformes. Historia Natural 2: 21-28
Contreras, J. R. (1983). Notas sobre el peso de aves argentinas. II. Historia Natural 3 (4): 39-40
De la Peña, M. R. (1997). Lista y Distribución de las Aves de Santa Fe y Entre Ríos. Monografía Especial 15. (L.O.L.A.) Literature of Latin America, Buenos Aires, Argentina.
De la Peña M. R. (1999). Aves Argentinas. Lista y Distribución. Ed. L.O.L.A. (Literature of Latin America); Monografía N.º 18 Buenos Aires, Argentina; 244 pp. ISSN: 0328-1620
De la Peña, M. R. (2012). Distribución y citas de aves de Entre Ríos. (1º Ed.) Santa Fe. Ediciones Biológica; 206 pp.
De la Peña, M. R. (2015). Aves argentinas (1º Ed.) Santa Fe: Ediciones UNL; CABA: Eudeba (Vol 1); 496 pp.
De la Peña, M. R. (2020). Aves Argentinas: Descripción, Comportamiento, Reproducción y Distribución. Comunicaciones del Museo Provincial de Ciencias Naturales “Florentino Ameghino” (Nueva Serie) Año 2020 | N° 7| Pág. 1-343| ISSN 0325-3856. (Actualización)
del Hoyo, J. (2020). All the Birds of the World. Lynx Edicions, Barcelona.967 pp.
Di Giácomo, A. S., M. V. de Franceso & Coconier, E. G. (2007). Áreas Importantes para la Conservación de las Aves en la Argentina. Sitios Prioritarios para la Conservación de la Diversidad. Temas de Naturaleza y Conservación Nº 5:1-514. Edición revisada y corregida. Aves argentinas/Asociación Ornitológica del Plata, Buenos Aires. (enlace)
Figueiredo, L. F. A. & Lo, V. K. (2000). Lista das aves do município de São Paulo. Bol. CEO. 14: 15–35. (enlace)
Giraudo, A. R., Baldo, J. L., & Abramson, R. R. (1993). Aves observadas en el sudoeste, centro, y este de Misiones (República Argentina), con la mención de especies nuevas o poco conocidas para la provincia. Not. Faun, 49, 1-13. (enlace)
Goerck, J. M. (1999). Distribution of birds along an elevational gradient in the Atlantic forest of Brazil: implications for the conservation of endemic and endangered species. Bird Conservation International 9(3):235–253. (enlace)
Guix, J. C., Tabanez, R. L. de Paiva, F. A. Ribeiro, L. A. Ribeiro, G. Paiva Rodrigues, G. Teixeira Rodrigues & F. L. de Souza(2020). Especies de aves registradas en el Parque Estadual Intervales, sudeste de Brasil, durante el periodo 2010-2019. Publicacions del Centre de Recursos de Biodiversitat Animal, Vol 5, 30 pp. (enlace)
Hayes, F. E. (1995). Status, Distribution and Biogeography of the birds of Paraguay. Monographs in Field Ornithology 1. American Birding Association, Colorado Springs, CO, USA. (enlace)
Hayes, F. E. & Scharf, P. A. (1995). The birds of Parque Nacional Ybycuí, Paraguay. Cotinga. 4: 14–19. (enlace)
Krauczuk, E. R. & Baldo, J. D. (2004). Contribución al conocimeinto de la avifauna de un fragmento de Selva con araucaria en Misiones, Argentina. Atualidades Ornitológicas 119: 1-44. (enlace)
Krauczuk, E. R. (2005). Aves do Inta-Campo Anexo ao Zaiman, e do Campus da Universidade Nacional de Misiones, Posadas, Misiones, Argentina. Atualidades Ornitológicas, 126, 1-22. (enlace)
López-Lanús, B. & H. Rodriguez Goñi (2004). Arasarí banana (Bailonius bailloni) muerto al depredar un nido de Carpintero oliva manchado (Veniliornis spilogaster). Nuestras Aves 47: 16-17. (enlace)
López-Lanús, B., A.S. Di Giacomo, A. Azpiroz, P. Haynes, A. Galimberti, A. Keyel, A. Ocampo, R. Güller, R. Moller Jensen, M.Mattalía, H. Cardozo, C. Giarduz, G. Papini y A.G. Di Giacomo (2013). Inventario focal de fauna de las estancias La Higuera, María Concepción, La Sirena y Virocay en el sitio piloto Aguapey: Corrientes, Argentina. En pp. 179-223/277-293/307-319/331-347/490,494-506: G.D. Marino, F. Miñarro, M.E. Zaccagnini y B. López-Lanús (eds.). Pastizales y sabanas del cono sur de Sudamérica: iniciativas para su conservación en la Argentina. Temas de Naturaleza y Conservación, Monografía de Aves Argentinas No 9. Aves Argentinas/ AOP, Fundación Vida Silvestre Argentina e Instituto Nacional de Tecnología Agropecuaria. Buenos Aires, Argentina. (enlace)
Lowen, J. C., Clay, R. P., Brooks, T. M., Esquivel, E. Z., Bartrina, L., Barnes, R., Butchart, S. H. M. & Etcheverry, N. I. (1995). Bird conservation in the Paraguayan Atlantic forest. Cotinga. 4: 58–64. (enlace)
Madroño, A., Robbins, M. B. & Zyskowski, K. (1997a). Contribución al conocimiento ornitológico del Bosque Atlántico Interior del Paraguay: Parque Nacional Caaguazú, Caazapá. Cotinga. 7: 54–60. (enlace)
Madroño, A., Clay, R. P., Robbins, M. B., Rice, N. H., Faucett, R. C. & Lowen, J. C. (1997b). An avifaunal survey of the vanishing interior Atlantic forest of San Rafael National Park, Departments Itapúa/Caazapá, Paraguay. Cotinga. 7: 45–53. (enlace)
Marateo, G., H. Povedano & J. Alonso (2009). Inventario de las aves del Parque Nacional El Palmar, Argentina. Cotinga 31: 47-60. (enlace)
Martínez Gamba, R. (2014). Lista de aves del Parque Natural Municipal Monte Seguín, Provincia de Misiones, Argentina. Nótulas Faunísticas. Segunda Serie. 163: 1-10. (enlace)
Moore, W. S., Weibel, A. C. & Agius, A. (2006). Mitochondrial DNA phylogeny of the woodpecker genus Veniliornis (Picidae, Picinae) and related genera implies convergent evolution of plumage patterns. Biological Journal of the Linnean Society. 87(4): 611–62 (enlace)
Narosky T. & Chébez, J. C. (2002). Aves de Iguazú: Guía para la identificación (1º Ed.) Buenos Aires, Argentina. Vázquez Mazzini Ed; 128 pp. ISBN: 987-9132-04-1
Narosky, T. & Yzurieta D. (2010). Guía de identificación Aves de Argentina y Uruguay. Buenos Aires; Vázquez Mazzini Editores. (16ª Ed.) 432 pp. ISBN: 978-987-9132-27-2
Olivera, L. R. (2015). Reflejos en las aguas del moconá: naturaleza e historia del Parque Provincial Moconá, su entorno y gente. (1º Ed.) CABA: Fundación de Historia Natural Félix de Azara; 184 pp. ISBN 978-3781-13-1
Olrog, C. Ch. (1979). Nueva Lista de la Avifauna Argentina. Opera Lilloana XXVII. Ministerio de Cultura y Educación. Fundación Miguel Lillo. AG ISSN 0078-5245
Parker, T. A., & J. M. Goerck (1997). The importance of national parks and biological reserves to bird conservation in the Atlantic Forest region of Brazil. In Studies in Neotropical Ornithology Honoring Ted Parker (J. V. Remsen, Editor), Ornithological Monographs No. 48. pp. 527–541. (enlace)
Planqué, R., Vellinga, W.P., Pieterse, S., Jongsma J. & de By, R. (Xeno-canto Foundation). Ficha: Carpintero Manchado (Veniliornis spilogaster). Recuperado en enero 2022 de https://xeno-canto.org/species/Veniliornis-spilogaster
Raffo, F. C., R. Laenen Silva, G. Capuccio Martínez, L. M. Bonín & De la Peña, M. R. (2014). Aves del Río Uruguay. C.A.R.U (Comisión Administradora del Río Uruguay); 247 pp. (enlace)
Saibene C. A., Castelino M. A., Rey N. R, Herrera J. & Caló J. (1996). Inventario de las Aves del Parque Nacional «Iguazú», Misiones, Argentina. Ed. L.O.L.A. (Literature of Latin America); Monografía 9, Buenos Aires, Argentina. ISSN: 0328-1620
Salvador, S. A. (2016). Distribución Reproductiva de las Aves de Argentina y sus Territorios. Recopilación inédita. Edición del Autor, Córdoba. (enlace)
Scherer-Neto, P. & Costa-Straube, F. (1995). Aves do Paraná. Ed dos autores. Curitiba, Paraná, Brasil; 79 pp. (enlace)
Scherer-Neto, P. & Costa-Straube, F., Carrano, E. & A. Urben-Filho (2011). Curitiba, Pr: Hori Consultoria Ambiental; 130p. (Hori Cadernos Técnicos n. 2) ISBN: 978-85-62546-02-0. (enlace)
Short, L. L. (Jr.). 1971. Aves nuevas o poco comunes de Corrientes. Rev. Mus. Arg. Cienc. Nat. Zool. IX (11): 283-309.
Short, L. L. (1985). Neotropical-Afrotropical barbet and woodpecker radiations: a comparison. Ornithological Monographs 36:559–574. (enlace)
Sick, H. (1997). Ornitologia Brasileira. Editora Nova Fronteira, Rio de Janeiro, Brasil (16º Ed.); 912 pp. ISBN 85-209-0816-0
Soares, E. S. & Anjos, L. (1999). Efeito da fragmentação florestal sobre aves escaladoras de tronco e galho na região de Londrina, norte do estado do Paraná, Brasil. Orn. Neotropical. 10(1): 61–68. (enlace)
Stotz, D. F., J. W. Fitzpatrick, T. A. Parker, & D. K. Moskovits (1996). Neotropical Birds: Ecology and Conservation. University of Chicago Press, Chicago, IL, USA, and London, UK.
Straneck, R. (1990). Canto de las aves de Misiones I. Ed. L.O.L.A. (Literature of Latin America). ISBN: 950-9725-09-9
Wetmore, A. (1926). Observations on the birds of Argentina, Paraguay, Uruguay and Chile. United States National Museum Bulletin 133. (enlace)
Winkler, H., D. A. Christie & A. Bonan (2020). White-spotted Woodpecker (Dryobates spilogaster), version 1.0. In Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie, and E. de Juana, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.whswoo2.01
Zotta, A. R. (1938). Lista sistemática de las aves argentinas. Hornero 007 (01) : 089-124 (enlace)
ESTADO DE CONSERVACIÓN SEGÚN BIRDLIFE INTERNACIONAL: PREOCUPACIÓN MENOR
Esta especie tiene un rango de distribución extremadamente grande y por lo tanto no se aproxima a los umbrales de vulnerabilidad bajo criterio de tamaño de la extensión de la población (Extensión < 20.000 km² combinado con una declinación o fluctuación del tamaño de la extensión, extensión/calidad del hábitat, o tamaño de la población y un pequeño número de localizaciones o con fragmentación grave). La tendencia de la población aparenta ser estable, por lo que la especie no alcanza los umbrales de Vulnerabilidad bajo el criterio de tendencia poblacional (disminución > 30% en diez años o en tres generaciones). El tamaño de la población no se ha cuantificado, pero no se cree que alcance los umbrales de Vulnerabilidad bajo el criterio de tamaño de la población (<10.000 individuos maduros con una disminución continua estimada > del 10% en diez años o en tres generaciones o con una estructura de población específica). Por estas razones, la especie es evaluada como “común” y de “preocupación menor” (Stotz et al., 1996:196). Se cree que la población es estable sin evidencias de amenazas.
En Argentina, No Amenazada (NA): según AA y SAyDS, 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable ). López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina. 1 ed. AOP: Buenos Aires, Argentina No Amenazada (NA): según MADS y AA, 2017 (Ministerio de Ambiente y Desarrollo Sustentable de la Nación y Aves Argentinas ). Categorización de las Aves de la Argentina según su estado de conservación. Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas. 146 p. 2017 No Amenazada (NA): según SAyDS, 2010 (Secretaría de Ambiente y Desarrollo Sustentable ). Categorización de aves autóctonas de Argentina. Lista de aves no registradas, endémicas y exóticas de Argentina (Res 348). 2010 Preocupación Menor (LC): según UICN (API) (Unión Internacional para la Conservación de la Naturaleza ). Lista Roja de la UICN publicada en https://www.iucnredlist.org. Actualización en tiempo real
InfoNatura: Animals and Ecosystems of Latin America [web application]. 2007. Version 5.0 . Arlington, Virginia (USA): NatureServe. Available: http://www.natureserve.org/infonatura. (Accessed: August 6, 2011 ).
Se distribuye en Sureste de Brasil, Sureste de Paraguay, Noreste de Argentina (Misiones, Este de Corrientes y Este de Entre Ríos) y Uruguay (De la Peña, 2020:71); (Stotz et al., 1996:328).
En el SE de Brasil (desde el Sur hacia el SE Goiás y Minas Gerais y NO de Paraná) (Scherer-Neto & Costa -Straube, 1995:38) (Scherer-Neto et al., 2011:67); (Aleixo & Galetti, 1997:252); Anjos, 2001:24); (Anjos & Schuchmann, 1997:59); (Ajos et al., 1997:167); (Bencke & Kindel, 1999:103); (Figueiredo & Lo, 2000:24); (Guix et al, 2020:22); (Soares & dos Anjos, 1999:66) (Belton, 1984:588); SE de Paraguay (Brooks et al., 1992135); (Capper et al., 2000); (Hayes, 1995:69); (Hayes & Scharf, 1995:48); (Lowen et al, 1995:63); (Madroño et al, 1997a:53); (Madroño et al., 1997b:57); NE Argentina y Uruguay (Wetmore, 1926:214) (Winkler et al, 2020); (Olrog, 1979:158)
En Argentina, Dryobates spilogaster (Wagler, 1827) en las provincias de Misiones, este de Corrientes y Entre Ríos (De la Peña, 2020:71); (Zotta, 1938:97); (De la Peña, 2015:385); (De la Peña, 1999:107).
HÁBITAT
Endémico del bosque atlántico (Brooks et al, 1992:135); (Aleixo & Galetti, 1997:252); (Goerck, 1999:246); (Bencke & Kindel, 1999:103); (Lowen et al, 1995:63); (Stotz et al., 1996:196); (Madroño et al, 1997a:53); (Madroño et al., 1997b:57); (Capmourteres et al., 2015:10); (Straneck, 1990:23); (Barnett & Pearman, 2001:52).
Residente en varios tipos de bosques y arbolado, de húmedo de tierras bajas (bosque ribereño) a parches de bosque aislados, de segundo crecimiento y zonas verdes abiertas con árboles bajos y espinosos (Winkler et al, 2020); también en zonas urbanas como Parques y Jardines (Figueiredo & Lo, 2000:24); (Marateo et al., 2009:57); (Stotz et al., 1996:196); (Olrog, 1979:158); (Martínez Gamba, 2014:6), selva secundaria tardía, capueras y selva marginal (Martínez Gamba, 2014:6); (Raffo et al., 2008:128).