• Jote cabeza negra | Distribución


    InfoNatura: Animals and Ecosystems of Latin America 2007

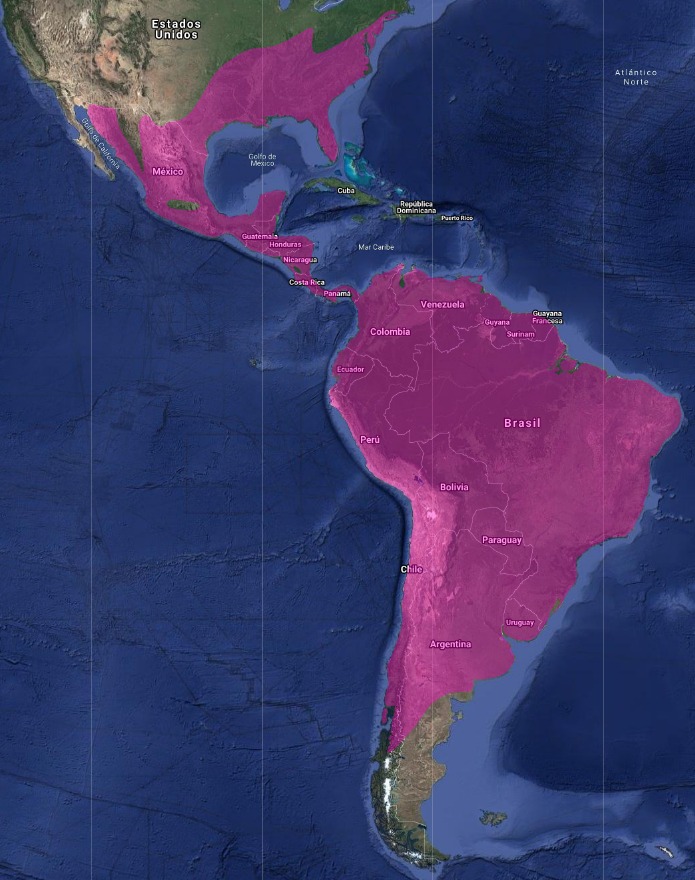
    Se distribuye por todo el continente americano desde Canadá a Chile y Argentina. Parte oeste de Sudamérica hasta el sur de Chile y Argentina.
    En Argentina:  Jujuy, Salta, Tucumán, Catamarca, La Rioja, Santiago del Estero, Formosa, Chaco, Misiones, Corrientes, Entre Ríos, Córdoba, Santa Fe, La Pampa, Buenos Aires, San Luis, San Juan, Mendoza, Neuquén, Río Negro, Chubut y Santa Cruz (De la Peña, 1987:44-45); (De la Peña, 1999:37).

    HÁBITAT

    Es la especie más difundida debido en gran parte a su adaptabilidad a diferentes entornos. Habita en lugares de poca vegetación (márgenes de bosques, orillas de ríos, y del mar), bosques, esteros y sabanas. También en zonas urbanas donde se le ve en los basureros.
    Ecorregiones: Altos Andes, Bosques Patagónicos, Campos y Malezales, Chaco Húmedo, Chaco Seco, Delta e Islas del Paraná, Espinal, Estepa Patagónica, Esteros del Iberá, Monte de Llanuras y Mesetas, Monte de Sierras y Bolsones, Pampa, Puna, Selva de Yungas, Selva Paranaense.

  • Jote cabeza negra | Comportamiento


    Muy sociable. Los miembros de la familia mantienen relaciones de larga duración. Los miembros más cercanos de la familia mantienen contacto estrecho a lo largo del año (Rabenold, 1986:32); (Rabenold, 1987b:647); (Parker et al., 1995:395). Viven muchos años, con registros de longevidad de 16 años y 10 meses (Clapp et al., 1982:103)
    Durante 3-4 meses después de emplumarse, el nido sirve de lugar de sociabilización diario para jóvenes y adultos (Rabenold, 1986:37). Más tarde, cuando la cría ya es mayor, se encuentran en los posaderos comunales y sitios de alimentación (Rabenold, 1986:37-38).
    Los padres alimentan los pichones hasta 6 meses después de emplumarse (Jackson, 1975:603); (Rabenold, 1986:38).
    Los juveniles y adultos mantienen contacto estrecho hasta la siguiente estación reproductiva, cuando los adultos se vuelven más agresivos y expulsan a los jóvenes del nido (Stewart, 1983:311).
    Una vez separados de sus padres, los juveniles vagabundean entre los posaderos y durante algún tiempo siguen a los adultos (muchas veces intolerantes con ellos), de los cuales aún dependen para alimentarse (Rabenold, 1987a:650-652).
    Durante este periodo de vagabundeo, los juveniles aprenden a alimentarse por sí mismos. Demoran mucho tiempo la reproducción (al menos 8 años) (Parker et al., 1995:395).
    De manera constante constituyen alianzas, e interactúan entre varias parejas de adultos y sus crías, aparentemente de forma cooperativa en posaderos y carcasas (Parker et al., 1995:395). Existe una fuerte asociación entre el grado de relación genética entre los adultos y cómo ellos interactúan. Individuos que son genéticamente similares es muy probable que utilicen el mismo dormidero la misma noche, así como, el acicalamiento mutuo solo entre parientes (y parejas); se ha observado que las peleas son principalmente entre individuos aparentemente no relacionados (Parker et al., 1995:399).
    A menudo, el Jote Cabeza Negra ocupa los posaderos comunales durante varios años, a veces décadas (Prather et al., 1976:668). Algunos son utilizados de forma permanente a lo largo del año, pero otros pueden utilizarse estacionalmente, o de forma temporal, cerca de fuentes de alimento eventuales (Sweeney & Fraser, 1986:24).
    Cada individuo utiliza varios posaderos dentro del área de residencia, formando un sistema de posaderos (Stolen, 1996b). A menudo comparte dormideros con el Jote de Cabeza Colorada (Prather et al., 1976:668); (Buckley, 1997:267); (Buckley, 1998:124) y Caranchos (Caracara plancus) (Ng & Jasperson, 1984:214).
    Los juveniles que aún son dependientes de sus padres muestran gran fidelidad con los posaderos, pero los mayores prefieren uno solo. Los adultos demuestran fidelidad intermedia (Rabenold 1987b:650).
    Son comunes los enfrentamientos en los posaderos comunales. La agresión se dirige a los que no pertenecen al grupo, y los perdedores es poco probable que vuelvan (Rabenold 1987b:651). Los adultos que tienen sus nidos cerca de los posaderos, ganan más enfrentamientos que en posaderos más alejados (Rabenold 1987:651). De esta forma, los adultos que se reproducen localmente pueden controlar, parcialmente, el acceso a los posaderos de individuos que no pertenecen al grupo. Estas agresiones reducen las posibilidades que los adultos sean seguidos a las zonas de alimentación por los extraños y minimizar los costes de compartir alimentos con tales individuos (Rabenold, 1987b:651).
    El Jote Cabeza Negra camina y corre bien, a veces con saltitos distintivos y las alas medio abiertas. Según Mahoney (1983, citado en Buckley 2020) corren a velocidades de alrededor de 6.6 km/h. A velocidades >7 km/h cambian de trote a galope, pero solo pueden mantener esta velocidad unos pocos minutos.
    Un componente importante en su estrategia de búsqueda de alimento es el vuelo planeado energético-eficiente. Su habilidad para cubrir grandes áreas, de una manera eficiente desde el punto de vista energético, le permite obtener alimentos espacialmente impredecibles, como es la carroña (Parrott, 1970:363).
    Generalmente corre 2-3 pasos para tomar el vuelo, aleteando si las termales son suaves. Utiliza el aleteo, normalmente, cuando se desplaza entre los posaderos y los sitios de alimentación conocidos (Kirk & Gosler, 1994:940); (Buckley 1997:267).
    Se eleva a gran altura, volando en círculos, aprovechando las corrientes térmicas ascendentes y planea manteniendo las alas en línea horizontal (Pennycuick, 1983:324). Vuelo estable, alternando rápidas batidas de alas con periodos cortos de deslizamiento. En vuelo, cabeza negra, puntas de alas blancas, cola corta en forma de abanico.
    Su vuelo es menos eficiente que el de otros buitres ya que las alas no son tan largas por lo que tiene menor superficie para planear. Regurgita cuando se le acercan o es molestado, con lo que disuade a sus predadores y emprende vuelo más fácilmente al disminuir su peso.


    En tierra tiene el hábito de “urohidrosis”: orina y defeca en sus patas para que se enfríen por evaporación. Tienden a alimentarse durante el día, volviendo a sus dormideros por la noche.
    Al carecer de olfato son más gregarios y por lo general dependen de su vista para distinguir animales inmóviles desde cientos de metros de altura. Planea alto aprovechando corrientes térmicas, a menudo con otras aves grandes como Jabirúes (Jabiru mycteria), Tuyuyúes (Mycteria americana) y Chajáes (Chauna torquata) (Di Giácomo & Krapovickas, 2005:227).
    Tiene buena relación con el hombre. Puede ser domesticado. Desempeñan importante labor sanitaria por su capacidad de eliminar deshechos de la actividad humana. Se ha demostrado que los microbios del carbunclo y cólera son destruidos en el aparato digestivo del Jote.
    Se ha registrado casos de acicalamiento a Caracara plancus (Carancho) en un posadero (Ng & Jasperson, 1984:214) y en carcasas (Haverschmidt, 1977:392); (Silva & Carmo, 2015:22); (Souto et al, 2009:1). El acicalamiento probablemente estrecha las relaciones sociales entre individuos de la especie, pero no se explica cuando se dirige a otras especies. El acicalamiento a Caranchos puede ser un error, o tal vez reduce la agresividad de estos últimos.
    El acicalamiento se realiza de forma generalizada (Haverschmidt, 1977:392); (Rabenold, 1986:33); (Stolen, 1996b) entre parejas, familiares, crías y hermanos (Rabenold, 1986:37); (Parker et al., 1995:399), en zonas que no pueden alcanzar con facilidad. Generalmente en los posaderos, pero también en carcasas (Rabenold, 1986:37); (Stolen, 1996b).
    Se baña en aguas poco profundas (Rea, 1983: 42); (Sazima, 2011:81)
    Suelen ser más tolerantes con otros individuos que nidifican en las cercanías como el Jote Cabeza Colorada (Jackson, 1983); (Stewart, 1974:598); (McHargue, 1977; citado en Buckley, 2020)


    ALIMENTACIÓN

    Oportunista, se alimenta fundamentalmente de carroña de grandes animales, aunque puede comer todo tipo de cadáveres (Stewart, 1978:79); (Coleman & Fraser, 1987:733); (Rabenold, 1987a:1775); (Buckley, 1996:480). Ocasionalmente consume presas vivas. En un análisis de egagrópilas del área periurbana de Dina Huapi (Río Negro, Argentina), realizado por Ballejo & De Santis, (2013:13), los autores encontraron, además de restos orgánicos, otros sintéticos como restos de bolsa de polietileno, fragmentos de plástico, goma elástica, cartón, fragmento de tela, cuerda, tanza de pesca, fragmento de baldosa, pintura sintética y otros restos indeterminados.
    El bulbo olfatorio del Coragyps atratus está menos desarrollado que el del Cathartes aura (Bang, 1964:155); (Bang & Cobb, 1968:58) y a diferencia del Cathartes aura, el Coragyps atratus no utiliza el olfato para localizar los cadáveres (Stager, 1964:55).
    Por lo tanto el Cathartes aura es más eficiente al localizar los restos y casi siempre precede a los Coragyps atratus, por lo que dependen de ellos para encontrar alimentos (Stewart, 1978:82); (Houston, 1986:318); (Houston, 1988:405); (Buckley, 1996:473); (Buckley, 1997:267); (Stolen, 1996:43)
    Una vez localizado el cadáver, los Coragyps atratus se acumulan rápidamente y desplazan a los Cathartes de la comida (Stewart, 1978:82); (Wallace & Temple, 1987:292); (Houston, 1988:405); (Stolen, 1996:43); (Buckley, 1997:267).
    Dado que su estrategia de alimentación se basa en mantener a los otros depredadores a la vista, los C. atratus vuelan más alto que los Catharthes (Stewart, 1978:82); (Houston, 1988:405); (Buckley, 1996:473); (Stolen, 1996:43). Utilizan las térmicas para ganar altitud, y llegan a alcanzar alturas hasta de ≥300 m (Houston, 1988:405).
    Los estudios de Rabenold (1987a:1775) y Buckley (1997:267) han demostrado que posado comunal del C. atratus juega un papel importante en su comportamiento de alimentación, dado que puede facilitar la formación de grupos para la búsqueda de alimentos (Rabenold, 1987a:1775); (Buckley, 1996:486), existiendo además, fuertes evidencias que estos grupos funcionan como centros de información (sitio de posado comunal donde se intercambia la información sobre la localización de los alimentos) (Ward & Zahavi, 1973:517).
    Los Jotes de Cabeza Negra no pueden abrir carcasas grandes por sí solos, dependen de los grandes carroñeros, que sí lo pueden hacer. Al contrario que el Cathartes aura, el cuál generalmente coloca uno o dos pies sobre la presa para comer, el Coragyps atratus no suele utilizar las patas (Houston, 1988:7).
    Cuando la carcasa está suficientemente abierta, pueden extraer las vísceras; esto desemboca en un gran ajetreo de pájaros que rápidamente tiran de ellas para engullir los trozos.
    Comen rápidamente (intervalo medio entre picotazos 4.52 s ± 0.8 SE, n = 126 (Houston, 1988:410), mientras que el Cathartes aura es más lento (intervalo medio entre picotazos 6.96 s ± 1.1 SE, n = 131), en parte porque ellos pasan más tiempo en posición alerta. Los Coragyps dependen muy estrechamente de los miembros de su grupo para alertar de la inminente llegada de predadores (Houston, 1988:411), y por ello son capaces de alimentarse más eficientemente.
    Sus métodos de alimentación son: 1) picoteando pequeños trozos diseminados alrededor y sobre la carcasa; 2) tirando de tejido muscular laxo o vísceras; 3) Desgarrando tendones de los huesos; 4) desgarrando trozos de piel (Houston, 1988:408).

    Ocasionalmente atacan y matan animales domésticos, incluso cerdos recién nacidos (Lovell, 1947:131); (Parmalee, 1954:445); corderos (Roads, 1936:219); (Sprunt, 1946:260) y terneros (Parmalee, 1954:445).
    Se alimenta sobre el suelo, aunque también a orillas del agua, por carroña o peces pequeños (Jackson et al, 1978:142).
    También se los ha citado cazando y comiendo: pichones de Garza Bruja (Nycticorax sp), mofetas y zarigüeyas (McIlhenny, 1939:472), crías de Tortuga Laúd (Dermochelys coriacea) (Mrosovsky, 1971:672). Individualmente atacan pequeños animales, pero los de mayor tamaño lo hacen en grupo. Se los ha citado, comiendo estiércol y material vegetal (McIlhenny, 1945:137). En Surinam, consumen frutos (dañados durante la cosecha) de cocoteros (Cocos nucifera) y Palmera africana (Elaeis guineensis) (Haverschmidt, 1947:210); (Elias & Valencia, 1982:214). En América Central y Sudamérica, generalmente buscan la comida en las ciudades, en vertederos y basura de las calles (Iñigo Elías, 1987:7); (Hill & Neto, 1991:173).
    Se lo ha registrado alimentándose de cadáveres de animales silvestres: Mulita grande (Dasypus novemcinctus), Gualacate (Euphractus sexcinctus), Zorro de monte (Cerdocyon thous), Lobito de río (Lontra longicaudis), Coatí (Nasu nasua), Aguará-popé (Procyon cancrivorus), Tapir (Tapirus terrestres), Pecarí de collar (Pecarí tajacu), Ciervo e los pantanos (Blastocerus dichotomus), Guazuncho pardo (Mazama gouazoupira), y Carpincho (Hydrochaeris hydrochaeris). También en cadáveres de grandes aves como Ñandú (Rhea americana), Cigueña americana (Ciconia maguari) y grandes reptiles como Yacaré (Caimán sp.), Curiyú (Eunectes notatus) y Ñacaniná (Hydrodynastes gigas). Peces muertos como Tarariras (Hoplias  Malabaricus) y Bagres sapos (Rhamdia quelen). Restos de placentas de pariciones del ganado (Di Giácomo & Krapovickas 2005:227); Huevos de Flamenco austral (Phoenicopterus chilensis) (De la Peña, 2020:14-15). Se han registrado individuos comiendo de bloques de sal (Coleman et al., 1986:281).
    No almacenan alimentos pero, visitan de forma repetitiva la misma carcasa durante varios días. Este hábito les permite a aquellos ejemplares que no conocían la localización, descubrirlas con solo seguir a sus con-específicos desde los posaderos (Rabenold, 1987a:1775); (Buckley, 1997:267).

    VOCALIZACIONES

    Los Jote Cabeza Negra carecen de siringe y musculatura asociada (Ligon, 1967:19) y por lo tanto solo pueden emitir un número limitado de sonidos.
    Los más comunes son silbidos y gruñidos que se escuchan fundamentalmente al comer y volar.
    Los “gruñidos” suenan como cuando los perros comen (Baynard, 1914b; citado en Buckley, 2020) o «guff, guff, guff» similar a cuando los perros ladran a la distancia (Saunders, 1906;166).
    Los adultos producen un silbido cuando son molestados al comer o en sus nidos (Baynard, 1914; citado en Buckley, 2020).
    Sonidos no vocales
    Cuando descienden a comer, a menudo lo hacen en ángulo agudo que genera un silbido (Thurber 1981:97).


    REPRODUCCIÓN

    Monógamos; se emparejan para toda la vida (Rabenold, 1986:34); en un estudio realizado en el norte del estado de Carolina, registró que las parejas se mantenían al menos 12 años, y solo se reemplazaban después de la muerte de uno de ellos (Decker et al. 1993:29). Estudios de ADN realizados sobre huellas de 16 familias nucleares, de 32 individuos en reproducción y 36 crías, no revelaron evidencias de paternidad fuera de la pareja; estos resultados indican que las parejas son estrictamente monógamas (Decker et al., 1993:29).
    Las parejas mantienen el contacto estrecho a lo largo de todo el año. Suelen posarse cerca del sitio probable antes de la nidificación (Stewart, 1983:310); (Jackson, 1983 y 1988; citado en Buckley, 2020); este comportamiento, el cual puede comenzar unas 4-6 semanas antes de depositar los huevos, puede permitirles valorar la calidad del sitio y la ausencia de elementos perturbadores a su alrededor (Stewart, 1983:310).
    En temporada reproductiva, varios autores han descrito vuelos aparentemente de cortejo; un individuo (aparentemente el macho) persigue a la hembra en el aire y periódicamente se lanza hacia ella (Bent, 1937:28-29); (Stolen, 1996b; citado en Buckley, 2020). El macho capta la atención de la hembra volando en círculos, con el cuello estirado hacia delante, mientras exhala profundamente; otra danza ritual consiste en enfrentarse uno a otro en un alarde arriba-abajo con el pico abierto (Rea, 1983; citado en Buckley, 2020); en esta danza, mantienen las alas totalmente desplegadas, alternando con saltos y emisión sonidos similares a “ladridos” (Rabenold, 1986:38)
    No construye nido. Deposita directamente los huevos en el lugar elegido y utiliza una gran variedad de sitios de nidificación, como cuevas, huecos oscuros en troncos de árboles y tocones, grietas entre las rocas (Coleman & Fraser, 1989b:21), arbustos y matorrales, edificios abandonados, rascacielos (Hill and Neto 1991:173), etc. (Marchant 1960:360-362); (De la Peña, 2013:88).
    En Argentina se reproduce desde fines de julio a mediados de diciembre. Lo hace en huecos de árboles y a veces sobre el suelo en un lugar protegido y oculto. Se encontraron nidos hasta los 6 ó 7 m de altura. Donde depositan los huevos pueden agregar trocitos de corteza o algunos pequeños palitos. En nidos en los pastizales agregaron pastos y trocitos de estiércol seco. Se localizaron nidos en Tucumán, Formosa, Chaco, Misiones, San Juan, Mendoza, La Pampa, Santa Fe, Córdoba, Buenos Aires, Neuquén, Río Negro (De la Peña, 2020:15); (Lucero, 2020:40); (Di Giácomo & Krapovickas 2005:227).
    Los sitios de nidificación seguros, frecuentemente son utilizados durante varios años seguidos (Jackson, 1988; citado en Buckley, 2020).
    Pone 2-3 huevos, en días consecutivos (Stewart, 1974:596), alternos o con intervalos de 2-3 días (Baynard, 1909; citado en Buckley, 2020). Existen numerosos registros de reemplazo de una nidada perdida (3-4 semanas después) con una nueva puesta (Hill & Neto 1991:175).
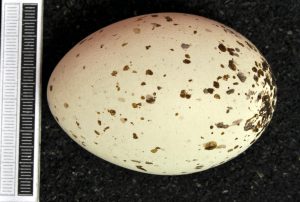
    La forma de los huevos varía entre ovalado, elíptico o ovoide elongado (raro fusiforme) (Bent, 1937:32). El tamaño de los huevos del C. a. foetens: 2 huevos medidos en Argentina: 74.5 x 45.0 y 72.0 x 47.0, respectivamente (Wetmore, 1962:4).
    El color de fondo es variable entre blanco, blanquecino, blanco grisáceo, cremoso, celeste pálido o celeste verdoso pálido, con manchas castañas, violáceas, pardas o negruzcas y pintas grises. Algunos con pocas pintas y manchas. A veces las manchas más concentradas en el polo mayor (Bent, 1937:32-33).
    Stewart observó que la incubación comenzaba con la puesta del primer huevo.
    En cuanto al periodo de incubación existen numerosas reseñas, pero las más convincentes sugieren que es de 38-39 días (Stewart, 1974:599).
    El autor (Stewart, 1974:596) comenta que, los adultos ocasionalmente pierden el rastro de sus huevos durante la noche, con el consiguiente enfriamiento, lo que podría contribuir a la variación en los registros de periodos de incubación. La eclosión puede ser el mismo día, o hasta 3 días después (Stewart, 1974:596).
    Ambos padres comparten la incubación por igual, alternándose cada 24 hs (Stewart, 1974:596 y 600).
    Mantienen los huevos en la parte superior de los dedos de los pies, dando pequeños pasos y arrastrando los pies debajo de ellos. También utilizan la mandíbula para posicionar los huevos, particularmente para que estén más próximos entre sí; utilizan el pico para recuperarlos cuando salen de esta posición (Stewart, 1974:596).
    El primer signo de eclosión es la aparición de una protuberancia cercana al extremo mayor (Bent, 1937:33); la cría extiende la brecha y fuerza la rotura de la cáscara. Este proceso completo puede tardar hasta 24 hs o más.
    Nacen cubiertos de abundante plumón de color beige; ojos oscuros y piel desnuda de la cara de color negro (Bent, 1937:32); pesan aproximadamente 70 g (McHargue, 1981:182).
    De crecimiento relativamente lento, el peso asintótico se alcanza alrededor de los 60-65 días (McHargue,1981:182); (Coleman & Fraser,1989a: 200-201). Este crecimiento lento puede ser una adaptación a los aportes impredecibles de alimentos debido a las condiciones climáticas (McHargue, 1981:182).
    Los autores creen que el mejor predictor de la edad es la medición del ala a los 80 días de edad, ya que es menos variable que el peso (Coleman & Fraser, 1989a:201); (Stewart, 1974:598)
    Las alas completamente emplumadas a los 65 días y han desarrollado las plumas del dorso y pecho, pero aún están cubiertos con plumón en zona inferior y cuello. A los 79 días ya están completamente emplumados con algo de plumón presente aún en pecho y vientre (McHargue, 1981:182).
    El primer vuelo es alrededor de los 75-80 días (Stewart 1974:598). Una vez que pueden volar, los juveniles suelen permanecer en las cercanías del nido durante alrededor de 10 días antes de abandonar a sus padres.
    Los padres cuidan a sus crías continuamente durante los primeros días después de la eclosión (Stewart 1974:596). Mientras aún son pequeños, los cubren con el pecho, pero al crecer son cubiertos con las alas (Stewart, 1974:597).
    La frecuencia de estos cuidados disminuye a partir de los 14 días, ya que los polluelos,  a esta edad,parecen ser capaces de regular independientemente la temperatura. Stewart observó que en algunos casos el cuidado diurno continuaba hasta los 24 días y hasta 43 días durante las noches, cuando ya los adultos dejan de pasar la noche en el nido.
    Cuando son pequeños, son alimentados frecuentemente por regurgitación directamente desde el pico de los padres (15-20 sesiones diarias). En base a sonidos, se cree que también son alimentados por la noche. Alrededor del día 14 comienzan a recibir alimentos sólidos, que aún toman del pico de los adultos. A medida que crecen, los padres pasan largos periodos fuera del nido y alimentan a los pichones solo 2-4 veces al día; solo los días en que las condiciones para el vuelo no son adecuadas (días lluviosos), pueden no alimentarse para nada (Stewart, 1974:597); (McHargue, 1981:182).
    Cuando son pequeños, los padres normalmente inician la alimentación extendiendo hacia ellos el pico (Stewart, 1974:597), sin embargo, al crecer los jóvenes solicitan activamente comida a sus padres emitiendo silbidos agudos, moviendo sus cabezas, extendiendo parcialmente las alas y pateando con los pies (McHargue, 1977:328).
    A los 21 días ya tienen incorporado el mecanismo de urohidrosis (McHargue, 1981:182).
    El periodo de dependencia de los juveniles es largo. La alimentación por los padres continúa hasta 5 semanas después de emplumarse y solicitan comida hasta 15 semanas después (McHargue, 1977:328).
     

    MIGRACIÓN

    Residente a lo largo de casi toda su distribución, aunque en invierno muchos individuos se retiran de las zonas extremas del norte y de las grandes altitudes. Por ejemplo, en Missouri, migran hacia el sur desde mediados de octubre a noviembre, y permanecen ausentes hasta febrero o principios de marzo (Robbins & Easterla, 1992:61); (Vickery, 1982:152); (Yee et al., 1994:82).
    También realizan movimientos locales, de corta duración, cuando el tiempo es desfavorable y retornan cuando cambian las condiciones climatológicas (Eisenmann, 1963:244); (Skutch, 1969:731); (Wetmore, 1965:161).
  • Jote cabeza negra | Taxonomía


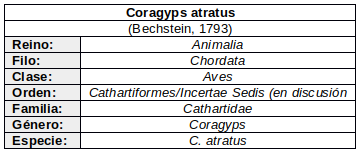
    * Los Jotes o Buitres americanos integrantes de esta familia son elevados a un Orden separado: Cathartiformes. Propuesta aceptada por el SACC (South American Classification Committee)

    Considerado Monotípico por Friedmann (1950:19-30), la American Ornithologyst Union (1957) y Stresemann & Amadon (1979:275). Sin embargo Wetmore (1962:1-4) y Blake (1977; citado en Buckley, 2020:  https://doi.org/10.2173/bow.blkvul.01) reconocen 3 subespecies. Su validación requiere futuros estudios de algunas de las características, (no cuantificadas), utilizadas para diferenciar las subespecies (Buckley, 2020:  https://doi.org/10.2173/bow.blkvul.01)

    SUBESPECIES (Según Wetmore, 1962:1-4)

    • C.a. atratus (Bechstein, 1793); “buitre negro de Norteamérica” (México, Tejas y Sur de EEUU)
    • C.a. brasiliensis (Bonaparte, 1850); “Buitre negro de América del Sur” (América Central, y norte de América del Sur)
    • C. a. foetens (Lichtenstein, 1817); “Buitre negro andino” (Zona andina, desde norte Ecuador, Bolivia, Paraguay, Uruguay, Argentina y tierras bajas de Chile)
  • Jote cabeza negra | Descripción


    © Andres Bertens. Jote de cabeza negra (Coragyps atratus foetens). Rocas de Santo Domingo. Valparaíso, Chile. Noviembre 2018. Algunos derechos reservados

    Tamaño medio. Monomórfico: machos y hembras no se diferencian en tamaño o apariencia.
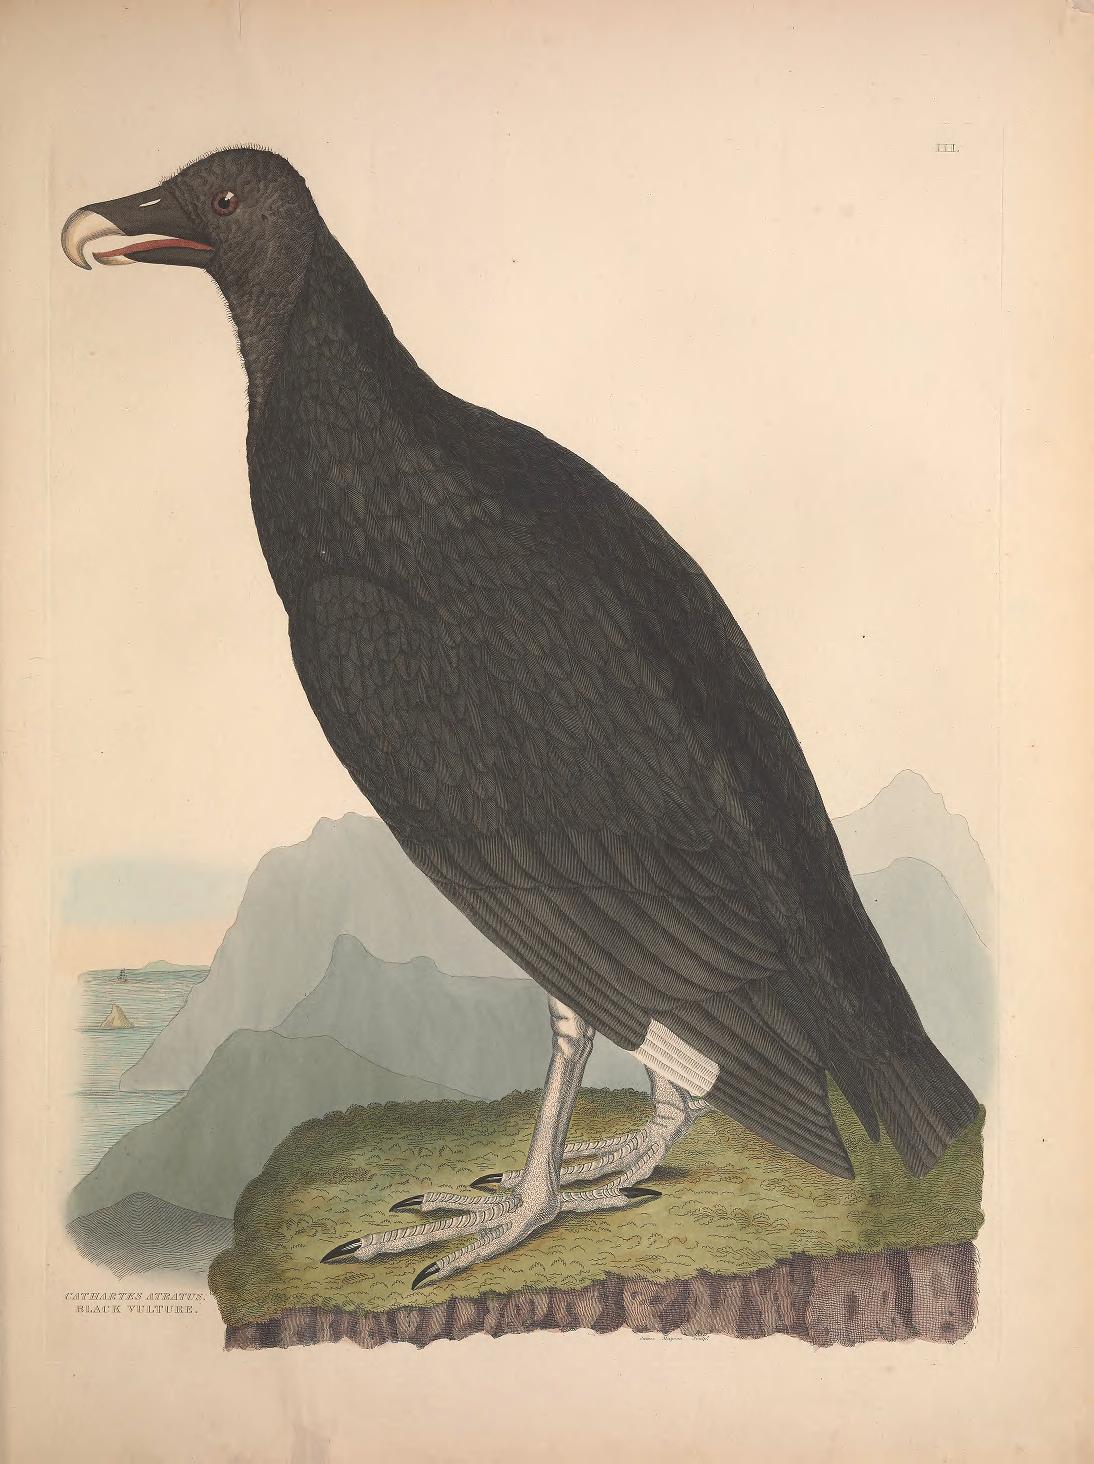
    Plumas de color negro (con tinte marrón en el dorso) y con manchas ventrales blanquecinas en la punta y eje de las primarias, produciendo una mancha blanca en la parte inferior del ala, que es visible cuando vuela.
    Cola de igual color que el cuerpo, corta y rectangular en forma de abanico que apenas sobrepasa el largo de las alas plegadas.
    Cabeza y parte superior del cuello implumes, gris y arrugada en los adultos, más oscura y lisa en los inmaduros, con algunas plumas cortas dispersas. Ambos lucen plumajes similares a lo largo del año. La distribución de las plumas sobre el cuerpo (pterlylosis) ha sido descrita por Fisher (1939:72). Tiene una única fila incompleta de pestañas en el párpado superior y dos filas en el inferior. Visión muy aguda.
    Pico negro y delgado con punta marfil, relativamente largo y ganchudo. Iris de color marrón oscuro (Buckley 1999).
    Las patas de color gris oscuro, teñido por el blanco de las heces.
    Técnicamente sin voz debido a la falta de siringe y sus músculos intrínsecos, lo que les hace incapaces de producir cualquier sonido por la vibración de la membrana. Se comunican, no obstante, por sonidos guturales como silbidos y gruñidos cuando se alimentan o luchan.
    Carecen de olfato.
    Frecuentemente se le ve posado con las alas abiertas. Se cree que esta postura cumple con múltiples funciones: secar las alas y calentar el cuerpo.

    (Buckley 2020, https://doi.org/10.2173/bow.blkvul.01)

  • Jote cabeza negra (Coragyps atratus)


    Illustrations of the American ornithology of Alexander Wilson and Charles Lucian Bonaparte (1835)

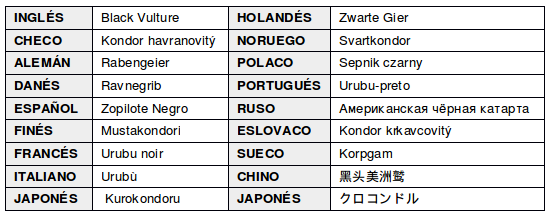
    NOMBRES COMUNES: Zamuro (Venezuela), Zopilote, Zopilote negro ó Nopo (México y El Salvador), Zopilote o Zote (Honduras), Sucha (Bolivia), Gallote o Gallinazo (Panamá), Zopilote o Zoncho (Costa Rica y Nicaragua), Chulo, Golero o Gallinazo (Colombia), Gallinazo (Perú), Gallinazo Negro (Ecuador), Jote (Chile y Argentina), Cuervo o Buitre negro (Argentina y Uruguay), Yrivu (Paraguay, sur y centro de Brasil), Urubu (Brasil); En guaraní » yryvu»

    EN OTROS IDIOMAS

    BREVES APUNTES HISTÓRICOS

  • Familia Cathartidae

    INTRODUCCIÓN

    Orden Cathartiformes: 1 Familia: Cathartidae, 8 Géneros y 7 especies (del Hoyo, 2020:266)
    En Misiones 3 géneros y 4 especies:

    Los buitres del mundo están separados en dos grupos anatómicamente diferentes. Para los Americanos se creó una familia aparte (Cathartidae), mientras que los del Viejo Mundo se incluyen en la familia Accipitridae de la orden Falconiforme (Sick, 1997:217). La familia Cathartidae está compuesta por cinco géneros, y siete especies muy similares entre sí (Hilty, 2020:266). Algunas de las características compartidas entre especies incluyen garras no prensiles, narinas sin divisiones internas (es posible ver a través de ellas de un lado a otro), alas largas y anchas, cabezas y cuellos desnudos y que se alimentan de carroña principalmente (Márquez et al., 2005:73)

    REVISIÓN HISTÓRICA

    Los fósiles de Cathartidae más antiguos que se conocen datan del Oligoceno inferior de América del Norte y de Brasil (Cuenca de Tabauté-Brasilogyps faustoi- (Alvarenga, 1985; en Sick, 1997:123)
    Según Winkler et al. (2020), los cathartidos, aunque superficialmente similares a los del Viejo Mundo, solo están relacionados muy lejanamente con ellos. La historia taxonómica de este grupo ha sido controvertida. Los primeros estudios bioquímicos de ADN sugerían que los Cathartidae eran hermanos de los Cicconidae que evolucionaron a partir de ancestros comunes, separándose en dos grupos hace 35/40 milllones de años (Sibley & Ahlquist, 1990) (Sick, 1997:217); entre ellos comparten algunas características como la estructura del esqueleto, el cráneo, algunas estructuras musculares y el lavarse las patas con sus propios excrementos. Pero esta relación buitre-cigueña ha sido refutada por estudios posteriores basados en secuenciación de ADN (Wink et al., 1996; Fain & Houde, 2004; Ericson et al., 2006a; Griffiths et al., 2007; Hackett et al., 2008; McCormack et al., 2013; Jarvis et al. 2014). Estos estudios más recientes sugieren rotundamente que, los Cathartidae entran dentro del grupo que incluye a Coraciiformes, Piciformes, Strigiformes, y Accipitriformes. Varios análisis a larga escala más recientes (Hackett et al. 2008, McCormack et al. 2013, Jarvis et al. 2014), colocan a los Cathartidae como hermanos de los Accipitriformes. Por otro lado, dadas las evidencias de amplias afinidades, los autores recomiendan mantenerlos, por ahora, en su propio orden. (South American Classification Commitee)

    GENERALIDADES

    Son aves de gran tamaño. Vuelan alto y planean muy bien. Ascienden aprovechando las corrientes térmicas y se mantienen en el aire sin batir las alas. Pueden ser vuelos de paseo o inspección y atravesar cientos de km sin aletear ni una vez. Vuela durante el día, desde la madrugada al crepúsculo observando y localizando a gran distancia cadáveres de animales (90 km a 700 m de altitud) (Sick, 1997:222). Pueden posarse cerca de animales muertos durante un día o más hasta asegurarse que el animal está realmente muerto y que no hay depredadores esperando tomar ventaja de sus relativamente escasas habilidades para despegar (sin viento que los eleve tienen grandes dificultades para remontar vuelo). Los C. Aura y C. burrovianus poseen olfato muy desarrollado, consiguiendo localizar cadáveres ocultos volando bajo (Winkler et al., 2020; Schulenberg et al., 2010:82; Athanas et al., 2016:56; Sick, 1997:222).

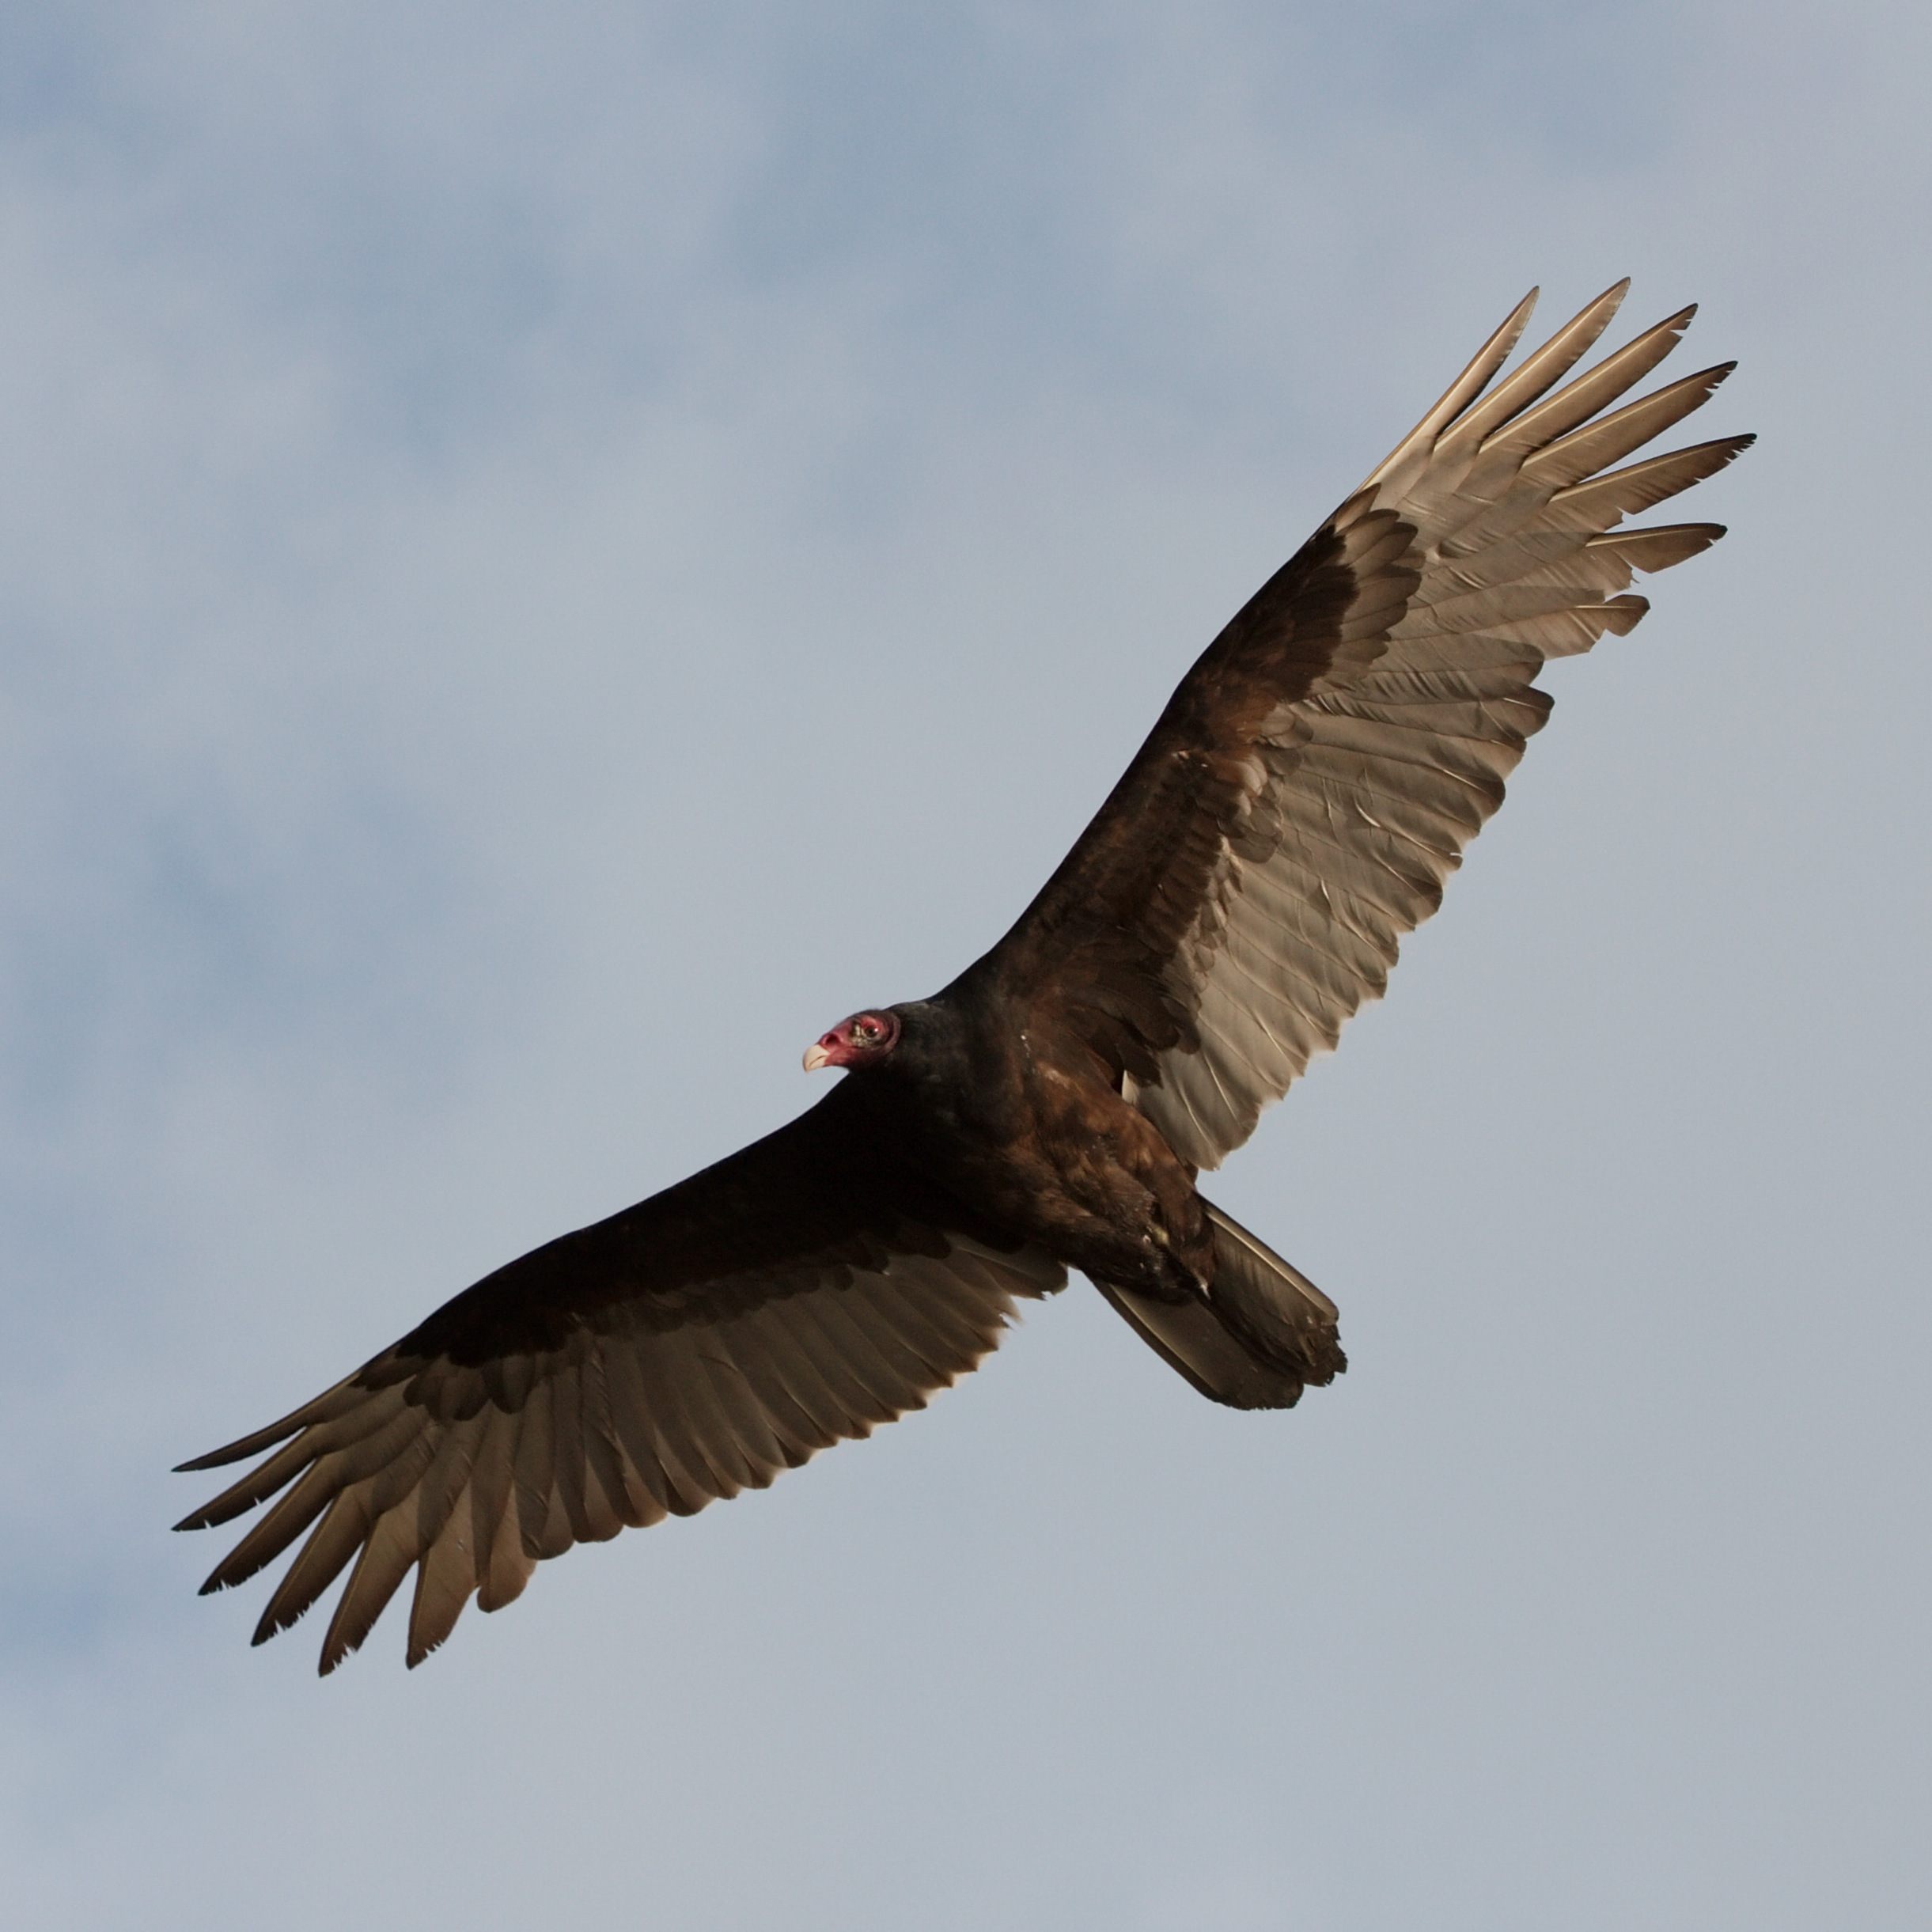
    © Dori. Turkey Vulture in Miami, Florida, USA. (Cathartes aura) Enero 2010. Algunos derechos reservados

    © Hans Hillewaert (Coragyps atratus) Everglades National Park, Florida. Mayo 2011. Algunos derechos reservados


    IDENTIFICACIÓN

    Sexos similares en la mayoría de las especies. El macho puede ser de mayor tamaño que la hembra.
    Plumaje negro o marrón. Alas largas, amplias y con las plumas de los extremos digitadas (adaptadas para planear). Cola larga, redondeada. Cuerpo ovoide, elongado, mediano a grande, aunque pequeño en relación con las alas. Pico mediano-corto, redondeado, con gancho apical menos fuerte que las de las aves de rapiña. El pico fino del Cathartes es apropiado para aprovechar presas muertas pequeñas, mientras que el pico fuerte del Coragyps sirve para rasgar la piel de cadáveres mayores y que ejecuta aún mejor el Sarcoramphus.
    Narinas perforadas; mudos, no poseen siringe, solo pueden “bufar” fuertemente (Sick, 1997:108) y carecen del tabique nasal que tienen los buitres del Viejo Mundo (Chester, 2008:184)
    Cabeza pequeña y cuello desnudos, lo que facilita su higiene con un denso collar de plumas que se interpreta como un obstáculo a que la comida pase al plumaje.
    Piernas cortas y gruesas, dedos bastante débiles con uñas cortas. Hállux elevado y corto al contrario que la mayoría de los Falconiformes. Se mueven a saltos.

    HÁBITAT

    Se distribuyen a través de los hábitats más variados (extensa distribución en hemisferio oeste), desde bosque tropical lluvioso hasta los altos picos de los Andes, llanos a desiertos, cañones, pastos y sabanas.

    ALIMENTACIÓN

    Adaptados a buscar su alimento entre los animales muertos. La especie Coragyps ataca ocasionalmente animales vivos que no pueden huir (Crías de tortuga, corderos recién nacidos) (Sick, 1997:222). Las especies Sarcoramphus y Cathartes tienen un excelente sentido del olfato, y a menudo detectan animales muertos a través de la vegetación espesa. Las otras especies confían en su visión aguda para localizar sus alimentos. También comen fruta y cocos de palmeras, carne de peces y reptiles en descomposición, y huevos y crías de atrás aves (Sick, 1997:204)
    Como consumidores de carroña juegan un importante papel sanitario, eliminando materias orgánicas en descomposición. El jugo gástrico es bioquímicamente tan activo que neutraliza las toxinas cadavéricas y las bacterias, eliminando posibles peligros de infección (Sick, 1997:221)

    REPRODUCCIÓN

    Parece que son especies monógamas con cuidados biparentales, pero se desconoce bastante sobre su biología reproductiva (Nunca ha sido descrita en Sudamérica). Lo que se sabe de los Cathartides del Norte es que no hacen nidos, y que las especies más pequeñas algunas veces anidan en sitios sorprendentemente expuestos, como cuevas, bordes de acantilados, agujeros de grandes árboles, nidos viejos de otras rapaces, en grietas de suelos pedregosos, junto a troncos y debajo de arbustos. La puesta es de 1-3 huevos ( las especies más grandes un solo 1 huevo, y las pequeñas generalmente tienen una puesta de 2 huevos). Periodo de incubación de 40-55 días (más largo en los cóndores), los polluelos salen del cascarón y son alimentados por regurgitación por ambos padres hasta que puedan volar; ambos padres incuban, cuidan y alimentan a las crías (Winkler et al, 2020; Chester, 2008:184; Sick, 1997:223).

    COMPORTAMIENTO

    Suelen ser gregarios. Los cadáveres en descomposición grandes, pueden reunir grupos que incluyen 3- especies de buitres (Vallely & Dyer, 2018:202)
    Extienden las alas cuando descansan (Sick, 1997:222).  Al igual que otros buitres americanos, tiene el hábito, poco común, de la urohidrosis (König, 1982), orinando o defecando sobre sus patas para disipar el calor por evaporación (Sick, 1997:112)

    IDENTIFICACIÓN EN VUELO
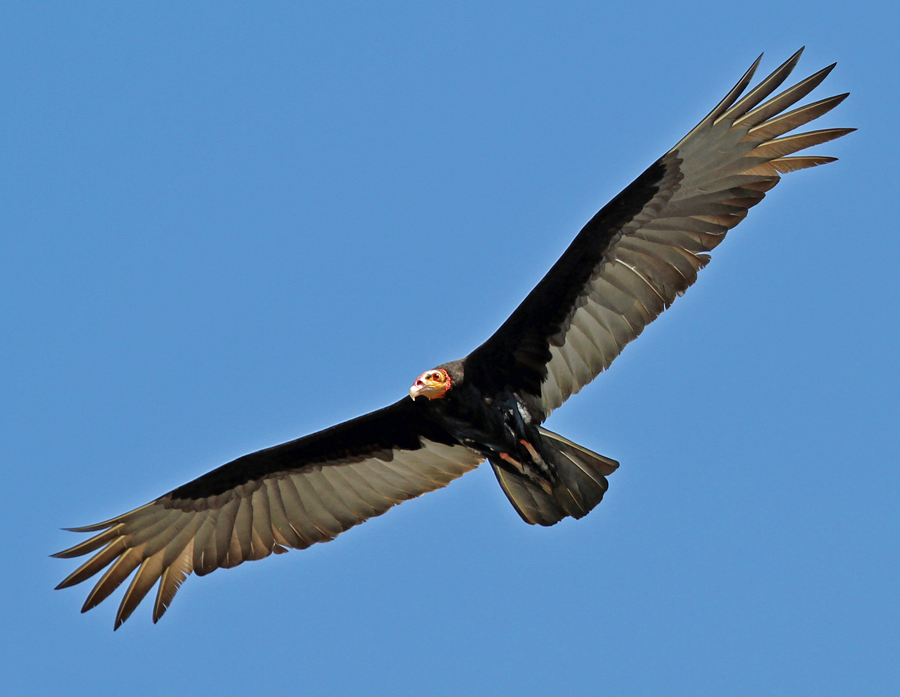
    Jote Cabeza Colorada (Cathartes aura)

    Jote Cabeza Amarilla (Cathartes burrovianus)

    © Dori (Cathartes aura) Florida. Enero 2010. Algunos derechos reservados
    © Jacek Kisielewski (Cathartes burrovianus) Brasil, Junio 2012. Algunos derechos reservados
    • Alas largas y anchas con dos tonos de coloración (remeras blancuzcas muy notables o, dicho de otra forma, se observan  ambas mitades posteriores de las alas de tono blanquecino y cubiertas inferiores, incluyendo el cuerpo se ven negras)
    • Generalmente vuelan en solitario.
    • Cabeza sin plumas: roja
    • Pico blanco y corto
    • Cola cuadrada, larga y delgada
    • Vuelo a vela, silueta en V, que se ladea frecuentemente.
    • Especies similares: Cathartes burrovianus
    • Generalmente vuelan en solitario, raro en grupos
    • Vuela con las alas en posición de diedro, con típico vuelo estático utilizando térmicas para mantener su altitud sin necesidad de batir sus alas.
    • Generalmente se mantiene a baja altura, raro que suba a altitudes mayores
    • Por debajo: remeras más claras, con cubiertas inferiores más oscuras.
    • Cola larga y delgada
    • Cabeza sin plumas: amarilla-rosada
    • Especies similares: Cathartes aura.
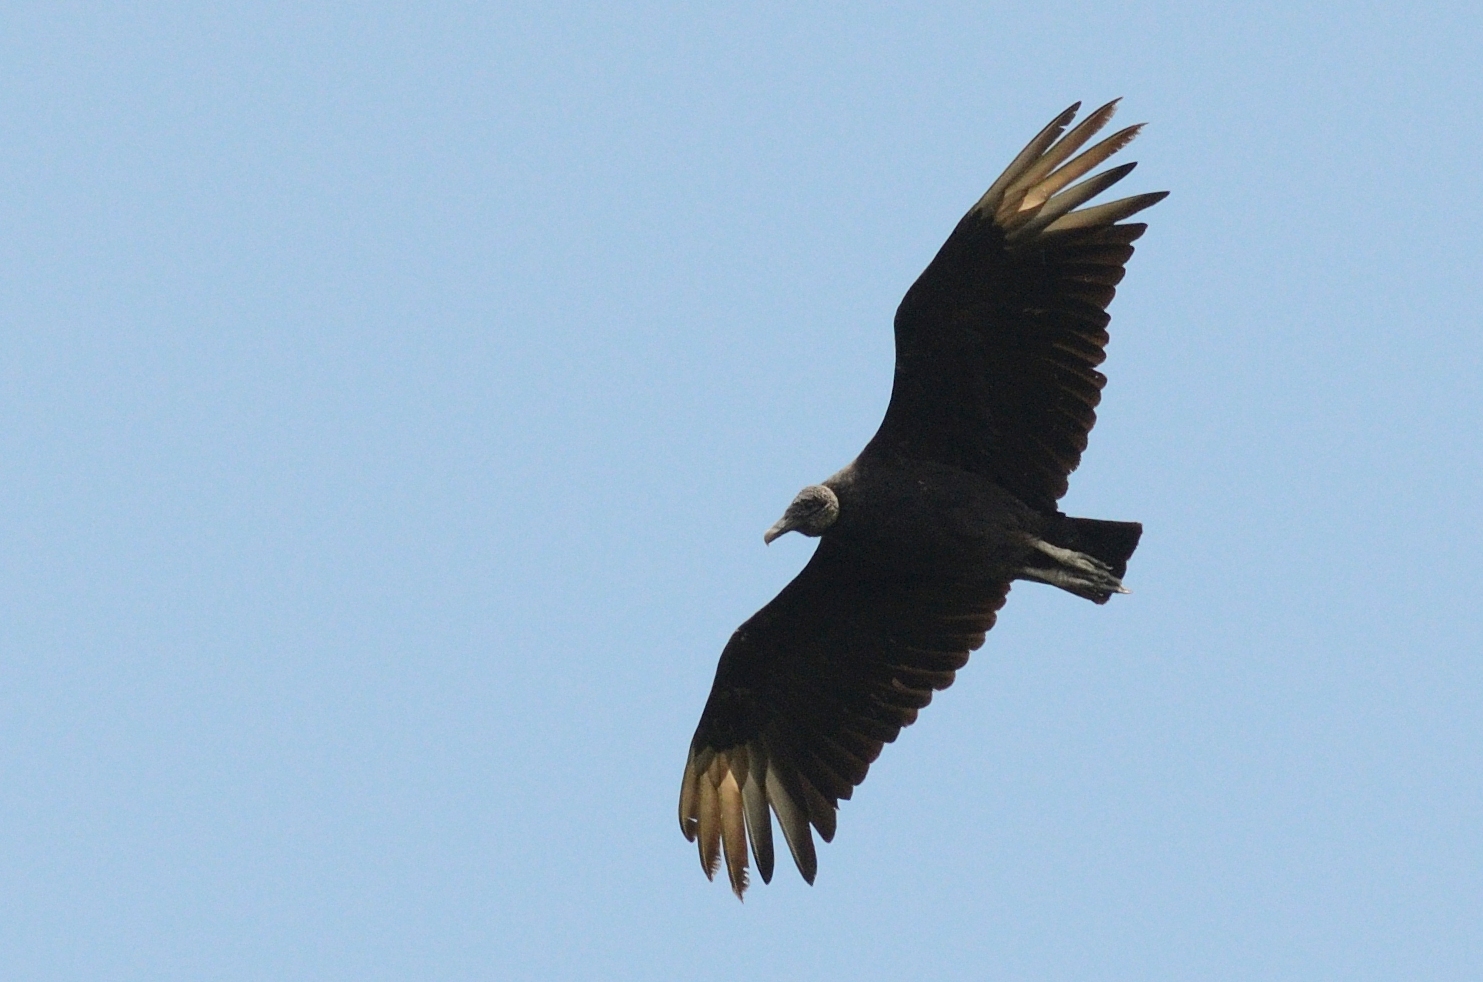
    Jote Cabeza Negra (Coragyps atratus)

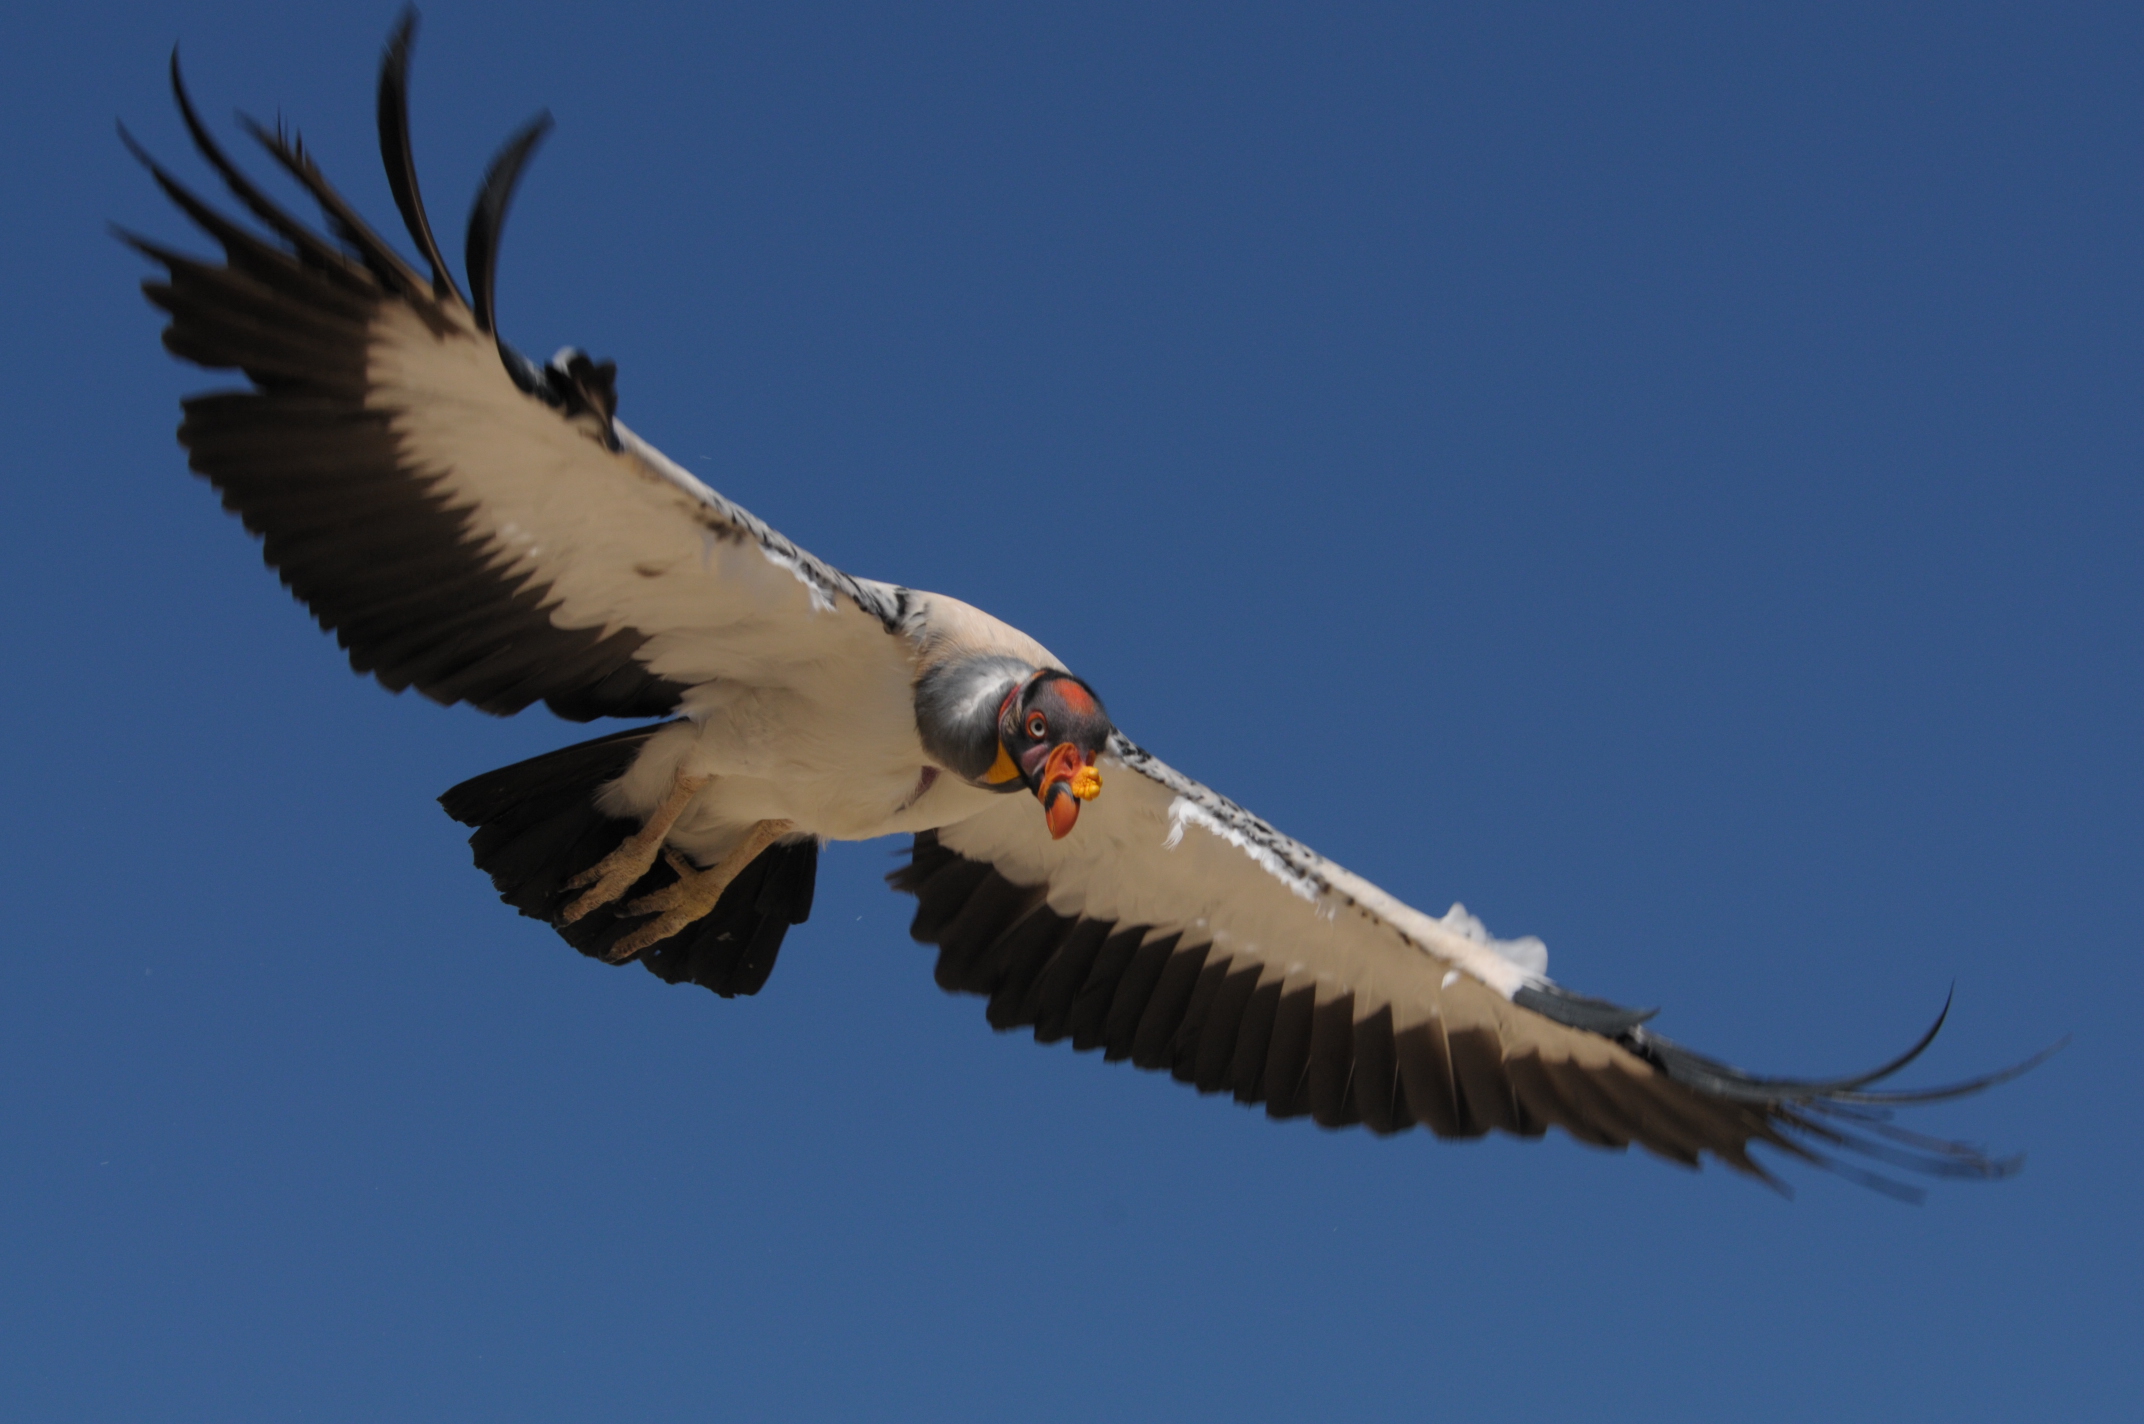
    Jote Real (Sarcoramphus papa)

    © Amado Demesa (Coragyps atratus) Huauchinango Puebla, México. Junio 2013 Algunos derechos reservados
    © Renato Augusto Martins (Sarcoramphus papa). Agosto 2016. Algunos derechos reservados
    • Generalmente vuela en grupos
    • Alas cortas sostenidas de forma horizontal con parches blancos en la base de las remeras
    • Silueta predominantemente negra
    • Cola corta en forma de abanico
    • Cabeza sin plumas de color negro
    • Pico blancuzco, muy corto
    • Vuelo con un particular estilo de planeo con aleteos profundos
    • Especies similares: Cathartes aura (posee alas y cola más larga y redonda; su vuelo se distingue por planeos más prolongados y bajos, ladeándose frecuentemente y perfil en V), C. burrovianus y C. melambrotus (se diferencian en vuelo por los parches blancos que C. atratus tiene en las alas).
    • En vuelo: contraste entre cubiertas internas blancas y remeras negras
    • Vientre blanco
    • Cola corta, ligeramente redondeada, negra
    • Pico rojo.
    • Especie similares: adulto en vuelo puede confundirse con Mycteria americana, y el juvenil puede confundirse con Cathartes aura.
    BIBLIOGRAFÍA
    1. Alvarenga, H.M. (1998) Sobre a ocorrência do condor (Vultur gryphus) no Holoceno da região de Lagoa Santa, Minas Gerais, Brasil. Ararajuba, 6(1), 60-63. (enlace)
    2. Amadon, D. (1977) Notes on the taxonomy of vultures. The Condor, 79(4), 413-416. (enlace)
    3. Athanas, N., Greenfield, P.J., Campbell, I., Cervantes Daza, P., Spencer, A. & Woods, S. (2016) Birds of Western Ecuador. Princeton University Press. 448 pp.
    4. Birkhead, T., Wimpenny,J. & Montgomerie, B. (2014) Ten Thousand Birds. Published by Princeton University Press. 518 pp.
    5. Coleman, J.S., Fraser, J.D., & Pringle, C.A. (1985) Salt-eating by Black and Turkey vultures. The Condor, 87(2), 291-292. (enlace)
    6. Cracraft, J., & Rich, P.V. (1972) The systematics and evolution of the Cathartidae in the Old World Tertiary. The Condor, 74(3), 272-283. (enlace)
    7. Chester, S.R. (2008) A wildlife guide to Chile: continental Chile, Chilean Antarctica, Easter Island, Juan Fernández Archipelago (1º Ed.) Princeton University Press. 392 pp.
    8. De La Peña, M.R. (2015) Aves Argentinas. Ed. EUDEBA, Buenos Aires:138-142
    9. Ericson, P.G., Anderson, C.L., Britton, T., Elzanowski, A., Johansson, U.S., Kallersjo, M., Ohlson, J.I., Parsons, T.J., Zuccon, D. & Mayr, G. (2006a) Diversification of Neoaves: integration of molecular sequence data and fossils. Biology Letters 2(4): 543–547. (enlace)
    10. Ericson, P.G., Zuccon, D., Ohlson, J.I., Johansson, U.S., Alvarenga, H. & Prum, R.O. (2006b) Higher-level phylogeny and morphological evolution of tyrant flycatchers, cotingas, manakins, and their allies (Aves: Tyrannida). Molecular Phylogenetics and Evolution 40(2): 471–483. (enlace)
    11. Enciclopedia Británica (1998) Vol 15; Macropedia: Birds: 1-108
    12. Fain, M.G. & Houde, P. (2004) Parallel radiations in the primary clades of birds. Evolution 58(11): 2558–2573. (enlace)
    13. Fonseca, J.P. (1922) Ligeiras notas sobre a biologia do Urubú caçador. Rev. Mus. Paul. 13:781. (enlace)
    14. Griffiths, C.S., Barrowclough, G.F., Groth, J.G. & Mertz, L.A. (2007) Phylogeny, diversity, and classification of the Accipitridae based on DNA sequences of the RAG-1 exon. Journal of Avian Biology 38(5): 587–602. (enlace)
    15. Hackett, S.J., Kimball, R.T., Reddy, S., Bowie, R.C., Braun, E.L., Braun, M.J., Chojnowski, J.L., Cox, W.A., Han, K.L., Harshman, J., Huddleston, C.J., Marks, B.D., Miglia, K.J., Moore, W.S., Sheldon, F.H., Steadman, D.W., Witt, C.C. & Yuri, T. (2008) A phylogenomic study of birds reveals their evolutionary history. Science 320(5884): 1763–1768. (enlace)
    16. Hatch, D.E. (1970) Energy conserving and heat dissipating mechanisms of the Turkey Vulture. The Auk, 111-124. (enlace)
    17. Hilty, S.L. (2002) Birds of Venezuela. Princeton University Press (2º Ed.). 875 pp
    18. Hilty, S.L. (2020) All The Birds of The World. Lynx Editions, Barcelona. 967 pp
    19. Houston, D.C. (1984) Does the King Vulture Sarcorhamphus papa use a sense of smell to locate food?. Ibis, 126(1), 67-69. (abstract)
    20. Houston, D.C. (1988) Competition for food between Neotropical vultures in forest. Ibis, 130(4), 402-417. (enlace)
    21. Jarvis, E.D., Mirarab, S., Aberer, A.J., Li, B., Houde, P., Li, C. Ho, S.Y.W., Faircloth, B.C., Nabholz, B., Howard, J.T., Suh, A., Weber, C.C., de Fonseca, R.R., Li, J., Zhang, F., Li, H., Zhou, L., Narula, N., Liu, L., Ganapathy, G., Boussau, B., Bayzid, S., Zavidovych, V., Subramanian, S., Gabaldón, T., Capella-Gutiérrez, S, Huerta-Cepas, J., Rekeplli, B., Munch, K., Schierup, M., Lindow, B., Warren, W.C., Ray, D., Green, R.E., Bruford, M.W., Zhan, X., Dixon, A., Li, S., Li, N., Huang, Y., Derryberry, E.P., Bertelsen, M.F., Sheldon, F.H., Brumfield, R.T., Mello, C.V., Lovell, P.V., Wirthlin, M., Schneider, M.P.C., Prosdocimi, F., Samaniego, J.A., Velazquez, A.M.V., Alfaro-Núñez, A., Campos, P.F., Petersen, B., Sicheritz-Ponten, T., Pas, A., Bailey, T., Scofield, P., Bunce, M., Lambert, D.M., Zhou, Q., Perelman, P., Driskell, A.C., Shapiro, B., Xiong, Z., Zeng, Y., Liu, S., Li, Z., Liu, B., Wu, K., Xiao, J., Yinqi, X., Zheng, Q., Zhang, Y., Yang, H., Wang, J., Smeds, L., Rheindt, F.E., Braun, M., Fjeldså, J., Orlando, L., Barker, K.F., Jønsson, K.A., Johnson, W., Koepfli, K.-P., O’Brien, S., Haussler, D., Ryder, O.A., Rahbek, C., Willerslev, E., Graves, G.R., Glenn, T.C., McCormack, J., Burt, D., Ellegren, H., Alström, P., Edwards, S.V., Stamatakis, A., Mindell, D.P., Cracraft, J., Braun, E.L., Warnow, T., Jun, W., Gilbert, M.T.P. & Zhang, G. (2014) Whole-genome analyses resolve early branches in the tree of life of modern birds. Science 346(6215): 1320–1331. (enlace)
    22. Johnsgard, P.A. (2009) Birds of the Great Plains: Family Cathartidae (American Vultures). (Revised edition 2009) by Paul Johnsgard. 15 (enlace)
    23. König, C. (1974) Zum verhalten spanischer Geier an Kadavern. Journal für Ornithologie, 115(3), 289-320.
    24. König, C. (1982) Zur systematischen stellung der Neuweltgeier (Cathartidae). Journal für Ornithologie, 123(3), 259-267.
    25. Márquez, C., Bechard, M. Gast, F. & Vanegas, V.H. (2005) Aves rapaces diurnas de Colombia. Instituto de Investigación de Recursos Biológicos «Alexander von Humboldt”. (1º Ed.), Bogotá, Colombia. 394 pp
    26. McCormack, J.E., Harvey, M.G., Faircloth, B.C., Crawford, N.G., Glenn, T.C. & Brumfield, R.T. (2013) A phylogeny of birds based on over 1,500 loci collected by target enrichment and high-throughput sequencing. PLoS One 8(1): e54848. (enlace)
    27. Narosky, T. & Yzurieta (2010) Guía de identificación Aves de Argentina y Uruguay. Buenos Aires: Vázquez Mazzini Editores: 90
    28. Raffaele, H., Wiley, J., Garrido, O., Keith, A. & Raffaele, J. (2003) Birds of the West Indies. Princeton University Press. 216 pp.
    29. Raffaele, H.A. & Wiley, J. (2014) Wildlife of the Caribbean. Princeton University Press. 296 pp
    30. Schulenberg, T.S., Stotz, D.F., Lane, D.F., O’Neill, J.P., Parker III, T.A. & Brack Egg, A. (2010) Birds of Peru. Princeton University Press. 664 pp.
    31. Sibley, C.G. & Ahlquist, J.E. (1990) Phylogeny and Classification of birds: A Study in Molecular Evolution. Yale University Press, New Haven, Connecticut
    32. Sick, H. (1997) Ornitologia Brasileira. Editora Nova Fronteira, Rio de Janeiro, Brasil. 912 pp
    33. South American Classification Committee (enlace)
    34. Vallely A.C. & Dyer, D. (2018) Birds of Central America: Belize, Guatemala, Honduras, El Salvador, Nicaragua, Costa Rica, and Panama. (1º Ed.) Princeton University Press. 584 pp.
    35. Wells, J.V. & Wells, A.Ch. (2017) Birds of Aruba, Bonaire y Curaçao. (1º Ed.) Cornell University Press. 474 pp.
    36. Whitacre, D.F., Jenny, J. Peter (2013) Neotropical Birds of Prey. Published by Cornell University Press. 412 pp.
    37. Wink, M., Heidrich, P. & Fentzloff, C. (1996) A mtDNA phylogeny of sea eagles (genus Haliaeetus) based on nucleotide sequences of the cytochrome b-gene. Biochemical Systematics and Ecology 24(7): 783–791.
    38. Winkler, D.W., S.M. Billerman,& I.J. Lovette (2020). New World Vultures (Cathartidae), version 1.0. In Birds of the World (S. M. Billerman, B. K. Keeney, P. G. Rodewald, and T. S. Schulenberg, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.cathar2.01
  • Arasarí chico | Bibliografía


    1. Administración de Parques Nacionales. S.I.B. Ficha: Selenidera maculirostris. Recuperado el 10/01/2021 de https://sib.gob.ar/especies/selenidera-maculirostris?
    2. Alves, M., & Raposo, M. (2009) Birds, Ilha Grande, state of Rio de Janeiro, Southeastern Brazil. Check List, 5, 300.
    3. ArgentAvis (s.f.) Ficha: Arasarí chico (Selenidera maculirostris); Recuperado el 19/01/2021 de http://argentavis.com.ar/2012/sitio/especie_co.php?id=611
    4. Barnett, J.M. & Pearman, M. (2001) Lista Comentada de las Aves Argentinas (1º Ed.). Lynx Edicions. Barcelona.
    5. Belton, W. (1984) Birds of Rio Grande do Sul, Brazil. Part 1. Rheidae through Furnariidae. Bulletin of the American Museum of Natural History 178(4):369–636. (enlace)
    6. Bencke, G.A., Dias, R.A., Bugoni, L., Agne, C.E., Fontana, C.S., Maurício, G.N., & Machado, D.B. (2010) Revisão e atualização da lista das aves do Rio Grande do Sul, Brasil. Iheringia. Série Zoologia, 100(4), 519-556. (enlace)
    7. BirdLife International (2021) Species factsheet: Selenidera maculirostris. Downloaded from http://www.birdlife.org on 29/01/2021.
    8. Bodrati, A. (2006) Yabotikaba: El Arbol frutal de la selva misionera. Naturaleza y Conservación 18: 10-15. Revista de Aves Argentinas/Asociación Ornitológica del Plata (enlace)
    9. Bodrati, A., Cockle, K., Segovia, J.M., Roesler, I., Areta, J.I. & Jordan, E. (2010) La avifauna del Parque Provincial Cruce Caballero, Provincia de Misiones, Argentina. Cotinga. 32: 41–64. (enlace)
    10. Bodrati, A., Areta, J. I., & White, E. (2012a) La avifauna de la Posada y Reserva Puerto Bemberg, Misiones, Argentina. Nuestras Aves 57: 63-80. (enlace)
    11. Bodrati, A. (2012b) Informe del relevamiento de la avifauna de la reserva y Posada Puerto Bemberg, Misiones, y recomendaciones para el manejo y conservación de sus ambientes naturales. Aves Argentinas / Asociación Ornitológica del Plata, Buenos Aires. (enlace)
    12. Brooks, T.M., Barnes, R., Bartrina, L., Butchart, S.H.M., Clay, R.P., Esquivel, E.Z., Etcheverry, N.I., Lowen, J.C. &Vincent, J. (1993) Bird Surveys and Conservation in the Paraguayan Atlantic Forest: Project CANOPY ’92 Final Report. BirdLife Study Report 57. BirdLife International, Cambridge. (enlace)
    13. Buzzetti, D.R.C. (2000) Distribução altitudinal de aves em Angra dos Reis e Parati, sul do Estado do Rio de Janeiro, Brasil. Pp. 131–148 in: Alves et al. (2000).
    14. Cavarzere Junior, V.A. (2010) Distribuição das aves ao longo de um gradiente altitudinal na Serra do Mar do Estado de São Paulo, Brasil (Doctoral dissertation, Universidade de São Paulo). (enlace)
    15. Cebolla Badie, M. (2000) El conocimiento mbya-guaraní de las aves. Nomenclatura y clasificación. Suplemento Antropológico, XXXV(2), 9-188. (enlace)
    16. Cory, C.B. (1919) Catalogue of Birds of the Americas. Publications of the Field Museum of Natural History, Zoological Series 13(2). 608 pp. (enlace)
    17. Cracraft, J. & Prum, R.O. (1988) Patterns and processes of diversification: speciation and historical congruence in some Neotropical birds. Evolution 42: 603-620. (enlace)
    18. Chébez, J.C. (1996) Fauna Misionera, Catálogo Sistemático y Zoogeográfico de los vertebrados de la Provincia de Misiones (Argentina) (1º Ed.). Editorial L.O.L.A. (Literature of Latin American).
    19. Chebez, J. C. & H. Casañas (2000) Áreas claves para la conservación de la biodiversidad de la provincia de Misiones, Argentina. (Fauna vertebrada), 102 pág. FVSA-WWF, Puerto Iguazú. (enlace)
    20. Chebez, J., Bosso, A., Heinonen, S., Liva, A. & Chavez, H. (2001) Aves del Parque Natural Municipal Dr. Luis Honorio Rolón. Puerto Iguazú, Misiones
    21. Dabbene, R. (1929) Los tucanes de la República Argentina. Hornero 004 (03): 265-271 (enlace)
    22. de Camargo Guaraldo, A. & Staggeimeier, V.G. (2009) Breeding of the Spot-billed Toucanet (Selenidera maculirostris) in the Wild. The Wilson Journal of Ornithology 121(4): 807–809 (enlace)
    23. de la Peña, M.R. (1999) Aves argentinas. Lista y distribución. Monografía 18. (1º Ed.) L.O.L.A. (Literature of Latin America); 244 pp.
    24. de la Peña, M.R. & Pensiero, J.F. (2011) Catálogo de nombres comunes de la flora argentina (1º Ed.) Santa Fe: Universidad Nacional del Litoral; 464 pp.
    25. de la Peña, M.R. (2015) Aves Argentinas (1º Ed.); Santa Fe. Ediciones UNL; CABA: EUDEBA. Vol.(1)
    26. de la Peña M.R., & Salvador S. (2016) Aves Argentinas: Descripción, comportamiento, Reproducción y Distribución. Trogonidae a Furnariidae. Comunicaciones del Museo Provincial de Ciencias Naturales “Florentino Ameghino” (Nueva Serie), 20(2)
    27. del Hoyo, J. (2020) All the Birds of The World. Lynx Ed. Barcelona; 966 pp
    28. Enciclopedia Británica (1998) Vol 15; Macropedia: Birds: 1-108
    29. Galetti, M., Laps, R. & Pizo, M.A. (1998) Frugivory by toucans (Ramphastidae) at two altitudes in the Atlantic forest in Brazil. Proceedings of the XXII International Ornithological Congress, Durban. Ostrich. 69: 371. (enlace)
    30. Guaraldo, A.C. & Staggemeier, V.G. (2009) Breeding of the Spot-billed Toucanet (Selenidera maculirostris) in the wild. Wilson Journal of Ornithology. 121(4): 807–09. (enlace)
    31. Guix, J.C. (1995) Aspectos da Frugivoria, Disseminação e Predação de Sementes por Vertebrados nas Florestas Nativas do Estado de São Paulo, Sudeste do Brasil. PhD thesis, Universitat de Barcelona, Barcelona.
    32. Guix, J.C. & Jover, L. (2001) Resource partitioning and interspecific competition among coexisting species of guans and toucans in SE Brazil. Netherlands J. Zool. 51(3): 285-298. (enlace)
    33. Guix, J.C., Martín, M., Hernández, A. & Souza, F.L. (2000) Conservation status of the Saffron Toucanet (Baillonius bailloni, Ramphastidae): a new case of population isolation and depletion in South America. Grupo Estud. Ecol., Sér. Doc. 6(2): 10-25. (enlace)
    34. Haffer, J. (1974) Avian Speciation in Tropical South America, with a Systematic Survey of the Toucans (Ramphastidae) and Jacamars (Galbulidae). Publications of the Nuttall Ornithological Club 14. The Nuttall Ornithological Club, Cambridge, Massachusetts. viii, 390 pp.
    35. Hayes, F.E. (1995) Status, distribution and biogeography of the birds of Paraguay. Monographs in Field Ornithology 1. American Birding Association, Colorado Springs, Colorado. (enlace)
    36. Ihering, von H. (1898) As aves do Estado de S. Paulo. S. Paulo: Typ. a vapor de Hennies irmãos.
    37. Jennings, J. (1985) The first captive breeding of the Spot-billed Toucanet. AFA Watchbird. 12: 36-38. (enlace)
    38. Lepage, D. (2003) Avibase-La base de datos World Bird; Ficha: Tucanete Piquimaculado-Selenidera maculirostris– (Lichtenstein, MHC, 1823); Recuperado el 19/01/2021 de https://avibase.bsc-eoc.org/species.jsp?avibaseid=F0C12CF99D999F26
    39. Lutz, H. L., Weckstein, J. D., Patané, J. S., Bates, J. M., & Aleixo, A. (2013) Biogeography and spatio-temporal diversification of Selenidera and Andigena Toucans (Aves: Ramphastidae). Molecular phylogenetics and evolution, 69(3), 873-883. (enlace)
    40. Martínez Gamba, R. (2014) Lista de aves del Parque Natural Municipal Monte Seguín, Provincia de Misiones,Argentina. Nótulas Faunísticas. Segunda Serie. 163: 1-10 (enlace)
    41. McConnell, M.J. (1991) Fostering the Green Aracaris. AFA Watchbird. 18: 27. (enlace)
    42. Narosky, T. & Chébez, J.C. (2002) Aves de Iguazú: guía para la identificación. (1º Ed.). Buenos Aires: Vázquez Mazzini Editores; 128 pp.
    43. Narosky, T., & Yzurieta, D. (2010) Aves de Argentina y Uruguay. Guía de identificación (16.a Ed.). Vázquez Mazzini Editores. Buenos Aires, Argentina
    44. Olivera, L.R. (2015) Reflejos en las aguas del moconá: naturaleza e historia del Parque Provincial Moconá, su entorno y su gente (1º Ed.) CABA: Fundación de Historia Natural Félix de Azara; 184 pp
    45. Olrog, C.Ch. (1959) Las Aves Argentinas. Una Guía de Campo. (1º Ed.). Universidad Nacional de Tucumán. Instituto «Miguel Lillo».
    46. Parker, T.A. & Goerck, J.M. (1997) The importance of national parks and biological reserves to bird conservation in the Atlantic Forest region of Brazil. Pp. 527–541 in: Remsen (1997). (enlace)
    47. Pearman, M. & Areta, N. (2015) Birds of Argentina. Species Lists of Birds for South American Countries and Territories. (Listas de Especies de Aves de Países y Territorios de Sudamérica.) South American Classification Committee (SACC). American Ornithologists’ Union (enlace)
    48. Planqué, R., Vellinga, W.P., Pieterse, S., Jongsma J. & de By, R. (Xeno-canto Foundation). Ficha: Tucanete piquimaculado · Selenidera maculirostris · (Lichtenstein, MHK, 1823); Recuperado el 19/01/2021 de https://www.xeno-canto.org/species/Selenidera-maculirostris
    49. Remsen, J.V., Hyde, M.A. & Chapman, A. (1993) The diets of Neotropical trogons, motmots, barbets and toucans. Condor. 95(1): 178–192. (enlace)
    50. Remsen, J.V., Jr.; Areta, J.I.; Bonaccorso, E.; Claramunt, S.; Jaramillo, A.; Pacheco, J.F.; Ribas, C.; Robbins, M.B.; Stiles, F.G.; Stotz, D.F. & K.J. Zimmer (2020) Version: 11 February 2020. A classification of the bird species of South America. American Ornithological Society. Species list by country: Argentina. https://www.museum.lsu.edu/~Remsen/SACCBaseline05.htm
    51. Ribas, C.C., Aleixo, A., Nogueira, A.C., Miyaki, C.Y., & Cracraft, J. (2012). A palaeobiogeographic model for biotic diversification within Amazonia over the past three million years. Proceedings of the Royal Society B: Biological Sciences, 279(1729), 681-689. (enlace)
    52. SACC (2006) A classification of the bird species of South America. Available at:  #http://www.museum.lsu.edu/~Remsen/SACCBaseline.html#.
    53. Saibene, C.A., Castelino, M.A., Rey, N.R., Herrera, J. & Calo, J. (1996) Inventario de las Aves del Parque Nacional “Iguazú”, Misiones, Argentina. Literature of Latin America, Buenos Aires.
    54. Short, L.L. (2020). Spot-billed Toucanet (Selenidera maculirostris), version 1.0. In Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie, and E. de Juana, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.spbtou1.01
    55. Sick, H. (1997) Ornitologia brasileira. Editora Nova Fronteira, Rio de Janeiro
    56. Silva, J.M.C. (1996) Distribution of Amazonian and Atlantic birds in gallery forests of the Cerrado Region, South America. Orn. Neotropical. 7(1): 1–18. (enlace)
    57. Stotz, D.F., Fitzpatrick, J.W., Parker, T.A. & Moskovits, D.K. (1996) Neotropical Birds, Ecology and Conservation. University of Chicago Press, Chicago & London.
    58. Straneck, R. (1990) Canto de las aves de Misiones I. L.O.L.A. (Literature of Latinamerica); Buenos Aires, Argentina
    59. Willis, E. O., & Oniki, Y. (2002) Birds of Santa Teresa, Espírito Santo, Brazil: do humans add or subtract species?. Papéis Avulsos de Zoologia, 42(9), 193-264. (enlace)
  • Arasarí chico | Conservación


    ESTADO DE CONSERVACIÓN SEGÚN BIRDLIFE INTERNACIONAL: PREOCUPACIÓN MENOR.

    Especie ampliamente distribuida (1.370.000 Km 2). Se sospecha que la población está disminuyendo localmente (debido a la destrucción y fragmentación del hábitat, caza y aislamiento de las poblaciones) (Guix et al., 2000:19), pero no se cree que sea lo suficientemente rápida como para alcanzar los niveles de vulnerabilidad bajo los criterios de tendencias de población (declinación > 30% en 10 años o 3 generaciones).
    El tamaño de la población no ha sido cuantificado pero tampoco se cree que alcance los umbrales de vulnerabilidad bajo los criterios de tamaño de la población (< 10.000 individuos maduros con una declinación continua estimada > del 10% en 10 años o 3 generaciones)
    Por estas razones esta especie es considerada “preocupación menor” y no amenazadas a nivel mundial (Stotz et al. 1996).

    En Argentina:
    Amenazada (AM): según AA y SAyDS, 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable ). López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina. 1 ed. AOP: Buenos Aires, Argentina
    Apéndice III (III): según CITES, 1997 (Convention on International Trade in Endangered Species ).CITES Apéndices. September, 1997
    Vulnerable (VU): según Libro Rojo, 1997 (Fundación para la Conservación de las Especies y el Medio Ambiente ). Libro Rojo de Mamíferos y Aves Amenazados de Argentina. García Fernández, J.J.; Ojeda, R.A.; Fraga, R.M.; Díaz, G-B. y R. Baigún. Ed. Dupont. 1997. 221pp. Primera Edición
    No Amenazada (NA): según MADS y AA, 2017 (Ministerio de Ambiente y Desarrollo Sustentable de la Nación y Aves Argentinas ). Categorización de las Aves de la Argentina según su estado de conservación. Informe del Ministerio de Ambiente y Desarrollo Sustentable de la Nación y de Aves Argentinas. 146 p. 2017
    Amenazada (AM): según SAyDS, 2010 (Secretaría de Ambiente y Desarrollo Sustentable ). Categorización de aves autóctonas de Argentina. Lista de aves no registradas, endémicas y exóticas de Argentina (Res 348). 2010
    Preocupación Menor (LC): según UICN (API) (Unión Internacional para la Conservación de la Naturaleza ). Lista Roja de la UICN publicada en https://www.iucnredlist.org. Actualización en tiempo real

  • Arasarí chico | Distribución


    InfoNatura: Animals and Ecosystems of Latin America 2007

    Se distribuye a través del bosque atlántico del sureste de Brasil (sur de Bahía y este de Minas Gerais al sur hasta Paraná y Santa Catarina, posiblemente hasta Río Grande do Sul) (Ihering, 1898:308; Belton, 1984:583; Bencke et al., 2010:551; Alves & Raposo, 2009:308; Willis & Oniki, 2002: 219; Cavarzere, 2010:27; Cory, 1919:374); este de Paraguay (Brooks et al, 1993:71) y noreste de Argentina.

    En Argentina: en la Provincia de Misiones

    Citas:
    (Bodrati, 2006:12-14); en Parque Provincial Cruce Caballero, Parque Provincial Esmeralda y alrededores de San Pedro (Misiones, Argentina).
    (Bodrati et al., 2010:58); en Parque Provincial Cruce Caballero (Dto. San Pedro), a 26º31’S, 54º00’O, en bosque en buen estado de conservación; endémico, residente y frecuente de observar.
    (Bodrati et al., 2012a:73); en Posada y Reserva Puerto Bemberg, a orillas del río Paraná casi en el extremo noroeste de la provincia de Misiones (25 º55’S, 54 º37’O) (en el sudoeste del departamento Iguazú en la localidad de Puerto Libertad (antiguamente Puerto Bemberg); endémico, residente, amenazado a nivel nacional
    (Bodrati, 2012b:23 y 48); Reserva y Posada Puerto Bemberg habita la reserva en forma regular en bajas densidades, y nidificaría como lo estarían demostrando las observaciones obtenidas por E. White; endémico, amenazado a nivel nacional, residente.
    (Chebez, 1996:138); en los departamentos de Iguazú, Eldorado, Montecarlo, Gral Belgrano ??, Lib. Gral San Martín.
    (Chébez & Casañas, 2000:24 y 62); amplia distribución en la provincia y en el Corredor Verde. Hoy el límite austral documentado de la especie coincide en el Valle del Cuñapirú y el Parque Provincial Moconá, límites australes del Corredor Verde. Desde la primer cita de Partridge en la década del ‘60, se fue reuniendo información, que en un principio la mostraban ligada al extremo norte de la provincia y a la selva con presencia de palmito (Euterpe edulis). En recientes prospecciones, la especie se hace presente tan al sur de la provincia, como en el Valle del Cuñapirú, pero su distribución coincidiría principalmente con el eje fluvial del Paraná. No se descarta su presencia en la cuenca del Uruguay dado que está citado para Río Grande do Sul y Santa Catarina. La especie sufre comercio pero los ejemplares en cuestión proceden mayormente de Brasil (Chebez, 1994, en Chébez & Casañas, 2000:62)
    Arroyo Uruguaí (Dto. Iguazú), próximo a la ruta 12, , 24/VIII/1957 (Partridge, 1961);
    Puerto Esperanza (Dto. Iguazú), 1974, col. A. Giai (A. Henz, com. pers. a J.C. Chebez) (C hebez, 1994);
    Montecarlo (Dto. Montecarlo), en la década de 1980, (H. Foerster, com.pers. a J.C. Chebez (Chebez, 1994);
    Parque Nacional Iguazú, ruta 101 a la altura del palmital, VII/1985 (Chebez et al. inf. inéd. y Saibene et al., 1996);
    Puerto Parehá (Dto. Eldorado), 1988 (F. Kruse, com. pers. a J.C. Chebez) (Chebez, 1994); (No ubicado)
    Deseado, vieja ruta 19, límite Parque Provincial Uruguaí (Dto. Iguazú) (C. Mackoviak, com. pers. a J.C. Chebez);
    Reserva Natural Privada Caá Porá (Dto. Gral. M. Belgrano), a 25º52’S, 54º03’O (J. R. Schmidt, com. pers. a J.C. Chebez);
    Puerto Iguazú (Dto. Iguazú), Aldea Yriapú, 1989 (L.H. Rolón y J.C. Chebez, obs.pers.), 1994 (J. Gorgues, com. pers.) y 1999 (J. Anfuso, com. pers. a J.C. Chebez);
    Cataratas del Iguazú, Parque Nacional Iguazú (Dto. Iguazú), (1997, C. Henschke in litt.)
    Parque Provincial Salto Encantado (Dto. Cainguás), (1997, C. Henschke in litt.);
    Arroyo Uruzú y ruta prov. 19, Parque Provincial Uruguaí (Dto. Gral M. Belgrano) VIII/1999 (M. Castelino, com. Pers.);
    Sendero Yacaratiá, ruta 12 vieja, Parque Nacional Iguazú (Dto. Iguazú) III/1993 (M. Castelino, com. Pers.); Sendero Macuco, Parque Nacional Iguazú (Dto. Iguazú), presencia regular (M. Castelino, com. pers.)
    Sendero Yacaratiá -25.67708, -54.45441 , Sendero Macuco, a -25.66983, -54.44816 , ruta 101 a la altura del palmital, Parque Nacional Iguazú (Dto. Iguazú)
    (Chébez et al., 2001); Parque Natural Municipal Dr. Luis Honorio Rolón, en Puerto Iguazú, a 25º38’S, 54º35’O
    (Dabbene, 1929); citado para la provincia
    (de la Peña, 1999:104); citado para la provincia
    (de la Peña & Salvador, 2016:41); citado para la provincia
    (Martínez Gamba, 2014:6); en Parque Natural Municipal Monte Seguín, endémica, en selva secundaria tardía y selva marginal
    (Straneck, 1990:17); Parque Nacional Iguazú (Dto. Iguazú)
    (SIB) Reserva Yabotí ; Avistajes según SIB, en Parque Nacional Iguazú, en el playón del viejo hotel Cataratas (Gdp. Garzón y Lic.Schiaffino); Uveniales próximos a Chacra Montero (Gdp. Argañaraz, Muñoz D. Y Teo G.); Camino a Apepú (a 600 m y 2600 m del arroyo Irene) (G.Gil y Cavicchia M.); Sendero Yacaratiá-arroyo Macuco (S.I.B.: Obs. Por Raymundi P. Delma. 2003);
    Fotografiado en: Bioreserva Karadya (C.López); Reserva privada y Ecolodge Surucuá (A. Terán).

  • Arasarí chico | Comportamiento


    VOCALIZACIONES

    Bruscas; semejantes a un gruñido, ásperos y graves: varias series de notas como «ggrooaw» ó «kkrowk» que repiten esporádicamente (semejantes a voces de sapos grandes -Sick 1997-). Las parejas suelen cantar de a uno a la vez, a veces juntos, pero por lo general no muy cerca uno del otro, con movimientos de “bombeo” muy enfatizado que le confieren un aspecto sorprendente (Straneck, 1990:17; Short, 2020)

    ALIMENTACIÓN

    Forrajea en canopia y subcanopia (Guix, 1995) y en la maleza, incluso hasta en la tierra. Se alimenta individualmente, en parejas o en pequeños grupos (de hasta 6 individuos) (Guix et al, 1997). Se alimenta de frutos, principalmente de palmito (Euterpe edulis), Geonoma elegans (Arecaceae), Cecropia glaziovii (Cecropiaceae), Guapira opposita (Nyctaginaceae), y otras especies de Lauraceae no identificadas (de Camargo Guaraldo & Staggeimeier, 2009:808); Bodrati (2006:12-14), lo registra alimentándose del fruto de Plinia trunciflora (yabotikaba, yaboticaba o yaboticabá) en el Dto. De San Pedro en la provincia de Misiones; También captura insectos (Galetti et al., 1998:847) y vertebrados. Realiza migraciones regionales siguiendo las estaciones de especies con frutas (Galetti & Pizo, 1998:844; Guaraldo & Staggeimeier, 2009:808; Short, 2020).


    (Basado en datos y citas de: Galetti et al., 2000:846-847; Bodrati, 2006:14; de la Peña & Pensiero, 2011)
    REPRODUCCIÓN

    La época de cría es la de primavera/verano que coincide con la floración y fructificación, por lo tanto en periodos estacionales en los que hay mayor cantidad y variedad de alimentos para sus polluelos.
    Diciembre a Junio en la zona norte y de Octubre a Enero en el sur. Pueden construir sus nidos en agujeros entre los 2 y 7 metros sobre el suelo (Camargo & Staggemeier, 2009)
    Anida en huecos o viejas cavidades de árboles o usurpan las de los pájaros carpinteros más grandes (Dryocopus lineatus): expulsan a los ocupantes realizando reiterados ataques al nido, acosando a los ocupantes hasta que consiguen que los abandonen.
    La puesta es de 2-3 huevos blancos, ovalados de forma más o menos elíptica, que son incubados por ambos padres durante aproximadamente 15-17 días.
    La pareja de cría (pareja primaria) defiende un pequeño territorio dentro de este área durante la época de reproducción, y posteriormente vuelven a unirse al grupo junto con las nuevas crías (de Camargo & Staggeimeier, 2009:807; Short, 2020)