FAMILIA CONOPOPHAGIDAE
- Género Conopophaga
- Conopophaga lineata (Chupadientes)
FAMILIA CONOPOPHAGIDAE
FAMILIA THAMNOPHILIDAE
FAMILIAS AVES (PASSERIFORMES) PRESENTES EN LA PROVINCIA DE MISIONES
ORDENES DE AVES NO-PASSERIFORMES PRESENTES EN LA PROVINCIA DE MISIONES
ESTADO DE CONSERVACIÓN SEGÚN BIRDLIFE INTERNACIONAL: PREOCUPACIÓN MENOR
De acuerdo con Snow & Kirwan (2020), la especie no se encuentra globalmente amenazada. Aunque no existen estimaciones cuantitativas sobre el tamaño de su población, aparentemente no es poco común a escala local. No obstante, ha experimentado un declive generalizado como consecuencia de la deforestación y presenta registros escasos en el estado brasileño de Santa Catarina, a pesar de que allí la cobertura forestal se mantiene relativamente extensa (do Rosario, 1996, en Snow & Kirwan, 2020). La especie está presente en diversas áreas protegidas de Argentina, Paraguay y Brasil, donde ha sido registrada con distinta frecuencia, incluyendo el Parque Nacional de Iguazú y el Parque Provincial Urugua-í en Argentina; el Parque Nacional de San Rafael y el Parque Nacional de Caaguazú en Paraguay (Madroño et al., 1997a:52/Madroño et al., 1997b:57); así como numerosos parques nacionales, estatales y reservas biológicas en Brasil, entre ellos Serra da Canastra, Sooretama, Desengano, Serra dos Órgãos, Itatiaia, Serra do Mar, Serra do Tabuleiro y Turvo, entre otros (Silveira, 1998:7; Bencke et al., 2006:293/324/362/399/419/448; Mallet-Rodrigues & Noronha, 2009:104; Pimentel & Olmos, 2011:10; Snow & Kirwan, 2020).
(Birdlife International, 2024): Esta especie tiene un rango extremadamente grande y por lo tanto no se aproxima a los umbrales DE Vulnerabilidad bajo criterio de tamaño de la extensión de la población (Extensión < 20.000 km² combinado con una declinación o fluctuación del tamaño de la extensión, extensión/calidad del hábitat, o tamaño de la población y un pequeño número de localizaciones o con fragmentación grave). A pesar de que la población parece estar disminuyendo, no se cree que esta declinación sea suficientemente rápida como para acercarse a los umbrales de Vulnerabilidad bajo el criterio de tendencia poblacional (disminución > 30% en diez años o en tres generaciones). El tamaño de la población no se ha cuantificado, pero no se cree que se aproxime a los umbrales umbrales de Vulnerabilidad bajo el criterio de tamaño de la población (<10.000 individuos maduros con una disminución continua estimada > del 10% en diez años o en tres generaciones o con una estructura de población específica). Por estas razones, la especie es evaluada como de «preocupación menor».
No se ha cuantificado el tamaño de la población mundial, pero esta especie se describe como «común» (Stotz et al., 1996:190).
En Argentina (Baryphthengus ruficapillus):
AvA-SADS-NA: No amenazada según AvA SAyDS 2008 (Aves Argentinas y Secretaría de Ambiente y Desarrollo Sustentable). López-Lanús, B., P. Grilli, E. Coconier, A. Di Giacomo y R. Banchs. Categorización de las aves de la Argentina según su estado de conservación. Informe de Aves Argentinas /AOP y Secretaría de Ambiente y Desarrollo Sustentable. Buenos Aires, Argentina 1º ed. AOP: Buenos Aires, Argentina
Res 348 SA-NA: No Amenazada según SAyDS Res 348 (Secretaría de Ambiente y Desarrollo Sustentable). Categorización de aves autóctonas de Argentina. Lista de aves no registradas, endémicas y exóticas de Argentina 2010.
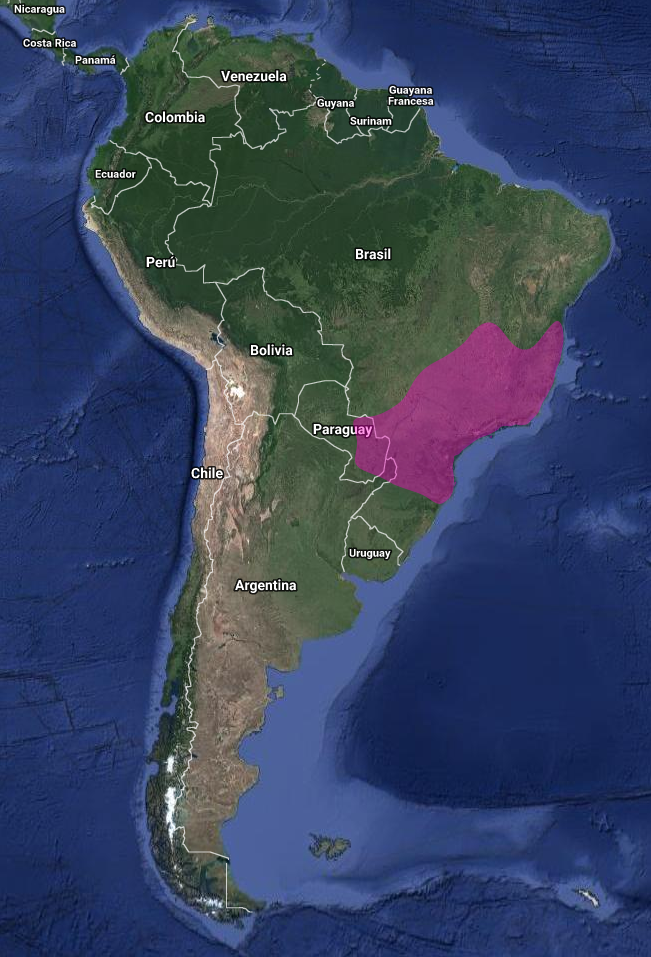
Se distribuye entre Este y Sur de Brasil (Bahía y Centro y Sur de Goiás hasta Mato Grosso do Sul y Norte de Rio Grande do Sul), Este de Paraguay y Noreste de Argentina (Misiones).
Distribución geográfica en Argentina (de la Peña, 2016:24; de la Peña, 2020:25)
Baryphthengus ruficapillus (Vieillot, 1818) en la provincia de Misiones.
Hábitat
Bosques bajos y de segundo crecimiento por talas; bosque de galería a lo largo de cursos de agua; hasta 1250 msnm (Stotz et al., 1996:190)
Ecorregiones: Endémico de la Selva Paranaense (Barnett & Pearman, 2001:51; Stotz et al., 1996:190).
Es un ave de hábitos solitarios, comportamiento pasivo y actividad predominantemente crepuscular. Se desplaza principalmente en los estratos medios e inferiores de la selva paranaense, donde suele permanecer posada en posición vertical, balanceando lateralmente su larga cola péndula. La defensa del territorio se realiza mediante vocalizaciones graves y profundas. Por lo general solo o en parejas y se reproduce en taludes o bancos cercanos al nivel del suelo. Su vuelo es lento y ondulado, característica atribuida a la corta longitud de sus alas (Snow & Kirwan, 2020).
VOCALIZACIONES
La especie presenta una actividad vocal predominantemente crepuscular y nocturna, con mayor frecuencia antes del amanecer y al atardecer.
Sus vocalizaciones consisten en emisiones breves, guturales y de carácter profundo, transcripto fonéticamente como “bu.ru.bu.bup” o “jurrrr”, repetido de forma esporádica y con clara preferencia por las horas del crepúsculo (de la Peña, 2015:370; de la Peña, 2020:24; Straneck en de la Peña, 2016). Otros autores coinciden describiéndolas como burbujeos sonoros y graves, tales como “bubububububub” (Belton, 1984:583), o como llamados secos y ventrílocuos, incluyendo variantes como “búuuu”, “du-dúg-dug-dug-dug-dug” y “rrrrü” (Sick, 1997:477). Estas emisiones suelen ser más audibles en ambientes de selva densa y oscura, donde la especie habita preferentemente (Snow & Kirwan, 2020; de la Peña, 2020:24).
ALIMENTACIÓN
La dieta de la especie se compone principalmente de insectos grandes y sus larvas, arañas, moluscos terrestres, pequeños reptiles, mamíferos y aves, con un aporte ocasional de fruta. En el caso de los jóvenes en el nido, su alimentación incluye artrópodos (41,8%), frutas (32,8%), gusanos (7,4%), pequeños vertebrados como ranas y lagartijas (6,6%), moluscos (0,8%) y elementos no identificados (10,6%). Dentro de los artrópodos, predominan los insectos (74,5%), seguidos por diplópodos, siendo los más comunes los Coleóptera (10%), Orthoptera, como los insectos palo (30%), Hymenoptera, especialmente hormigas y, en menor medida, abejas (60%), y orugas (30%). A medida que los jóvenes se desarrollan, la proporción de artrópodos disminuye, mientras que el consumo de frutos, especialmente de Virola gardineri y una especie de Myrtaceae, aumenta significativamente en la fase de volantón (Alves et al., 1999:33). Además, ocasionalmente sigue a las hormigas arrieras, aprovechando presas perturbadas por ellas, y a veces se une a bandadas mixtas de forrajeo (Aleixo, 1997, en Snow & Kirwan, 2020).
REPRODUCCIÓN
Se caracteriza por anidar en madrigueras excavadas entre enero y abril, período en el que el suelo se mantiene húmedo debido a las lluvias estivales. La puesta ocurre probablemente entre septiembre y octubre, con registros de polluelos alimentados a comienzos de octubre y durante la segunda mitad de noviembre, así como de juveniles recién volantones a principios de diciembre (Alves et al., 1999:33). Asimismo, se ha documentado un nido activo, aunque sin huevos, en noviembre en el noreste de Argentina (Protomastro, 2001:19).
El nido consiste en una madriguera excavada en bancos de tierra o reutilizada a partir de cavidades abandonadas por otros animales, como armadillos (Tatú), cuya estructura puede diferir notablemente. Generalmente presenta un túnel de más de 1 m de longitud que culmina en una cámara sin revestimiento de aproximadamente 35 × 14 cm. En el Parque Nacional Iguazú (departamento Iguazú, Misiones), se describió un nido en el suelo con dos entradas de 10 a 12 cm de diámetro, una asociada a una antigua cueva de tatú; el túnel medía 2,8 m de longitud y la cámara terminal, ubicada a 25 cm de profundidad, presentaba dimensiones similares (de la Peña, 2016:24). Protomastro (2001:19) también describió un nido excavado en el techo de una gran cavidad posiblemente perteneciente a un tatú, con galerías inactivas cercanas correspondientes a ciclos reproductivos previos; la galería activa alcanzaba 2,8 m y poseía una segunda entrada situada a 0,8 m de la cámara, aparentemente utilizada exclusivamente para la atención del nido.
La puesta consta de dos a tres huevos y ambos sexos participan en la alimentación de las crías, con visitas al nido que oscilan entre 0 y 10 por hora; sin embargo, se ha observado que uno de los miembros de la pareja puede invertir más en el cuidado parental, mientras el otro compensa mediante una mayor dedicación a la defensa territorial y a comportamientos antidepredadores (Alves et al., 1999:33). Previo a ingresar a la madriguera, ambos adultos muestran un comportamiento cauteloso, posándose repetidamente en ramas cercanas e inspeccionando el entorno; durante este proceso, realizan movimientos pendulares de la cola, característicos de los momotos y particularmente intensos durante la época reproductiva (Alves et al., 1999:32–33).
A pesar de que se conoce que ambos miembros de la pareja reproductora excavan el túnel y nidifican en una cámara ubicada a lo largo de este, la información disponible sobre la ecología reproductiva de la especie sigue siendo limitada (Sick, 1997). Un diagrama detallado de la estructura del nido se presenta en Alves et al. (1999:32).
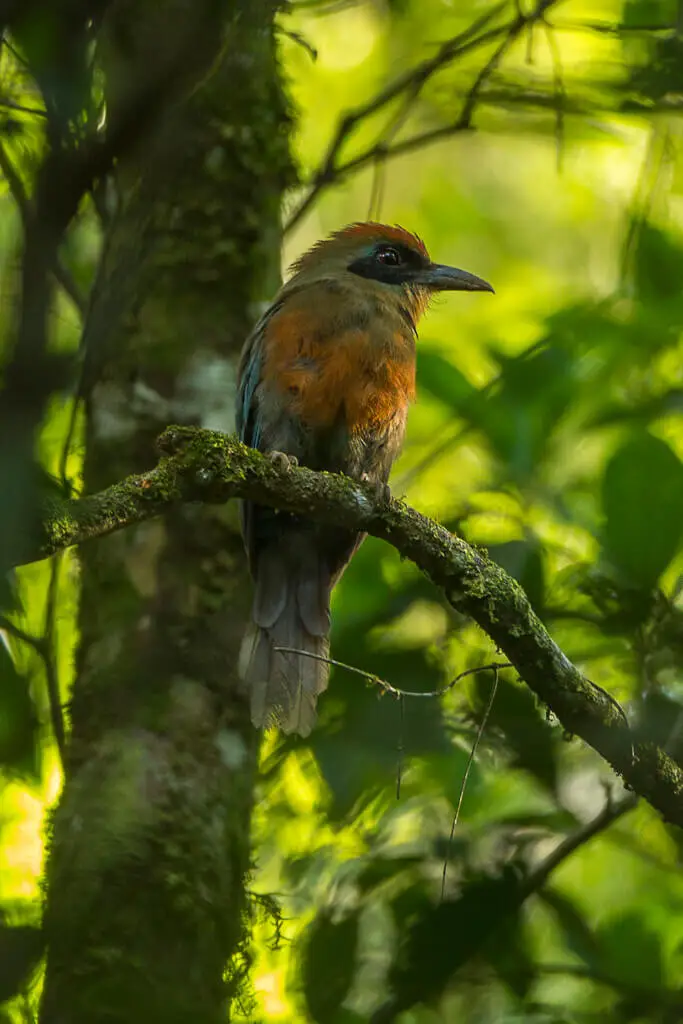
Según los siguientes autores: Belton, 1984:583; Sick, 1997:477; Snow, 2001:264;Snow & Kirwan, 2020; de la Peña, 2015:370; de la Peña, 2020:24.
Sexos similares.
Ambos sexos tienen la frente, corona y nuca castaño rojizas. Lores, plumas por encima del ojo (superciliares), lados de la cara y auriculares negras bordeados de turquesa.
Mejillas, garganta y parte superior del pecho color oliva-azulado.
Partes superiores verdes con reflejos amarillentos, volviéndose verde-oliva en espalda y lomo, incluidas las cubiertas alares y la cola. Cubiertas alares primarias y remeras verdes más azuladas-brillantes en las puntas.
Garganta y pecho verde oliva. En zona superior y central del pecho mechón de plumas elongadas de color negro con puntas verdes (a veces ausentes durante la muda). Banda en parte inferior del pecho rojo-canela y parte inferior del vientre y subcaudales verde azulado.
Vientre y subcaudales verde-azulado.
Cola larga verde con reflejos azulados.
Pico negro, aserrado; patas y pies gris oscuro/marrones-grisáceas claras.
Iris marrón-rojizo oscuro.
Juvenil más apagado que el adulto.
Se diferencia del B. martii totalmente alopátrico por un plumaje generalmente más verde y apagado, con menos rufo, cola más corta y marcadamente menos graduada, timoneras centrales que se estrechan hasta un extremo romo sin raquetas.
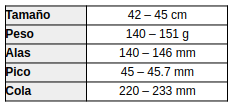
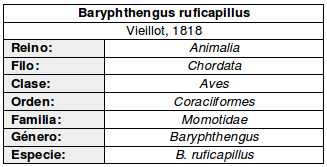
Monotípico.
Estrechamente relacionado con B.Martii, y a menudo tratado como con-espespecífico. En estudios recientes se ha demostrado que las razas propuestas: aeruginosos (Mina Gerais, Rio de Janeiro), septentrionalis (Sao Pablo) y abreui (Paraná) solo se basan en variaciones individuales, sin significación geográfica.
Se considera el nombre berlai (Goiás) como inválido (Snow & Kirwan, 2020).